
Testo © Prof. Angelo Messina
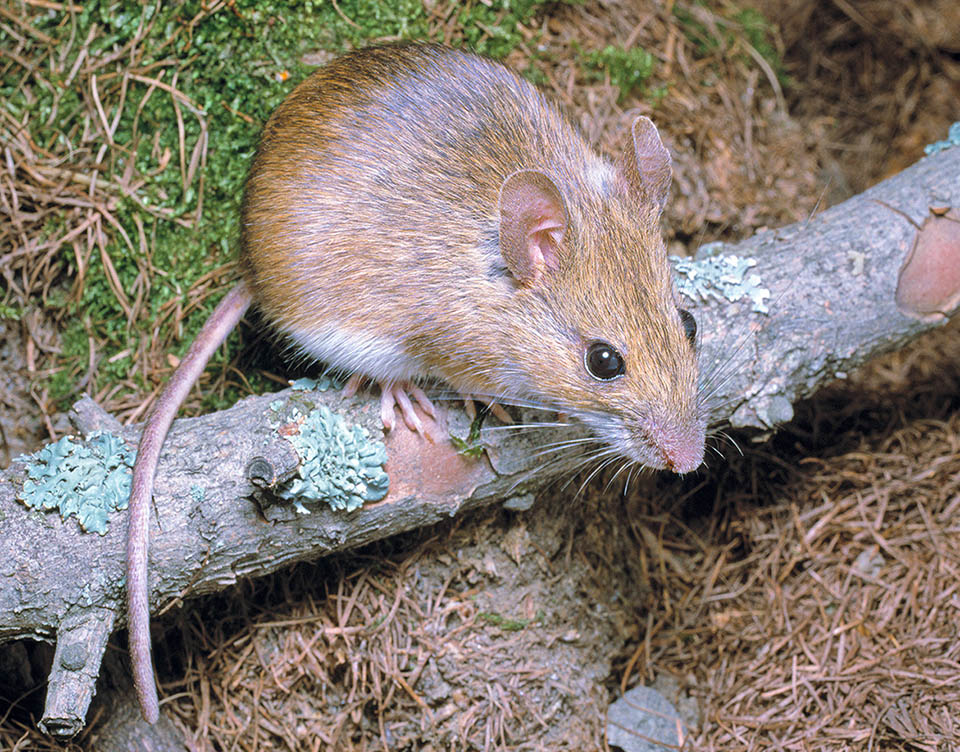
La classe dei mammiferi ospita specie con dimensioni molto variabili: qui un Apodemus sylvaticus che raggiunge al massimo i 22 grammi © Giuseppe Mazza
I mammiferi (Mammalia) costituiscono una classe di Vertebrati i cui rappresentanti si caratterizzano principalmente per la presenza di ghiandole mammarie, da cui il nome, e per essere dotati di una struttura scheletrica metamerica interna, ossea e/o cartilaginea (colonna vertebrale).
I mammiferi riuniscono specie a sangue caldo (omeotermi), in quanto animali che mantengono la temperatura corporea costante, indipendentemente dalle variazioni della temperatura ambientale.
Altra caratteristica tipica della quasi totalità dei mammiferi, è quella di avere il corpo ricoperto di peli, strutture esclusive di questi animali, di costituzione molto varia e che di solito formano una pelliccia.
Dal punto sistematico e tassonomico, la classe comprende forme molto varie e molto note, quali topi, gatti, cani, cavalli, pecore, pipistrelli, cervi, leoni, elefanti, canguri, delfini, balene, foche, scimmie, uomo e molte altre forme, oltre ad un elevato numero di specie e di ordini estinti.
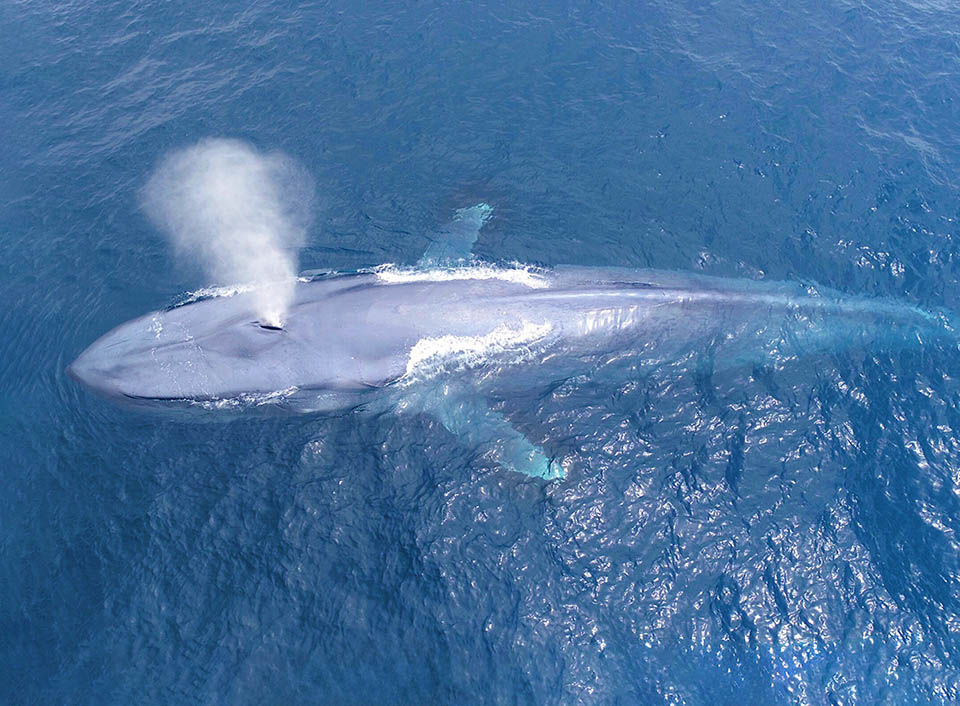
Mentre la Balenottera azzurra (Balaenoptera musculus) può superare i 30 m di lunghezza e 200 tonnellate © saintsfc
Le dimensioni dei rappresentanti della classe dei mammiferi sono estremamente variabili; alcuni come topi, criceti, toporagni, pipistrelli, raggiungono una lunghezza complessiva, coda esclusa, anche inferiore a 5 cm e un peso di appena qualche grammo. Viceversa, tra i Cetacea, la Balena azzurra (Balaenoptera musculus Linneo, 1758), con i suoi 30 e più metri di lunghezza e con un peso che mediamente si aggira sulle 120-130 t e anche oltre, è il più grande animale tuttora vivente conosciuto. Generalmente però, la maggior parte delle specie raggiunge dimensioni piccole o modeste. Animali tipicamente tetrapodi, provvisti cioè di quattro arti, in alcuni casi modificati o del tutto scomparsi nel corso dell’evoluzione, i mammiferi hanno il tegumento variamente conformato, di norma sottile, provvisto di numerose ghiandole sebacee, sudoripare, odorifere e mammarie.
Nella maggioranza dei mammiferi, esteriormente il corpo è distinguibile in diverse regioni anatomiche principali: capo, collo, tronco, a sua volta ripartito in torace, addome e bacino, e coda se presente. Ed ancora, come già detto, il corpo dei mammiferi è provvisto di quattro arti, un paio anteriori e un paio posteriori. A seguire si rappresentano sinteticamente gli attributi essenziali che caratterizzano la classe dei mammiferi.
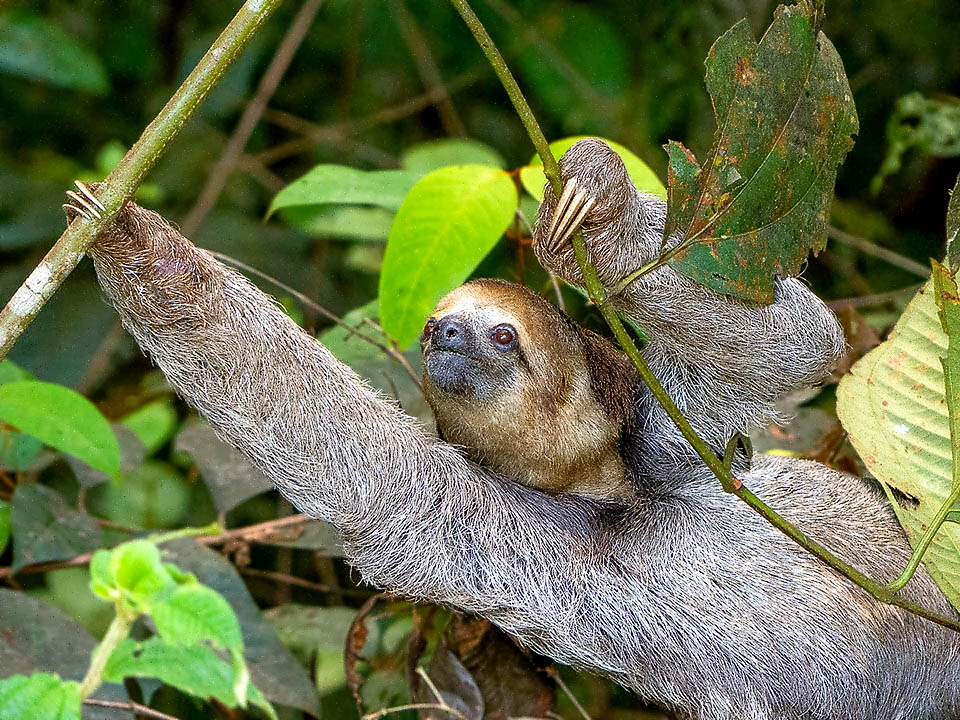
Il capo dei mammiferi è in genere relativamente grande per il notevole sviluppo dell’encefalo e presenta una buona mobilità. Bradypus tridactylus può ruotarlo di quasi 360° © Matheus Fernandes Moraes Silva
CAPO
Il capo dei mammiferi è generalmente provvisto di un muso ben pronunciato, di solito di grandi dimensioni in confronto al resto del corpo. La grandezza del capo va messa in relazione con il volume dell’encefalo, che nella maggior parte delle specie è ben sviluppato, specialmente la neocorteccia. In relazione ad attività di difesa o predazione, il capo è sovente dotato di buona mobilità, talora molto ampia.
Il Bradipo (Bradypus), genere di mammifero dell’ordine dei Pilosa che vive nelle foreste tropicali dell’America centrale, riesce ad avere una mobilità di quasi 360° del capo grazie a speciali giunture nel collo.
Nei mammiferi, la struttura scheletrica del capo, cranio, appare chiaramente diversa da quella dei Rettili, con sensibile riduzione del numero delle ossa, e si caratterizza per la tendenza ad estendersi sopra le ossa della faccia. Il cranio è provvisto di due condili occipitali mediante i quali si articola con la prima vertebra cervicale, l’atlante.
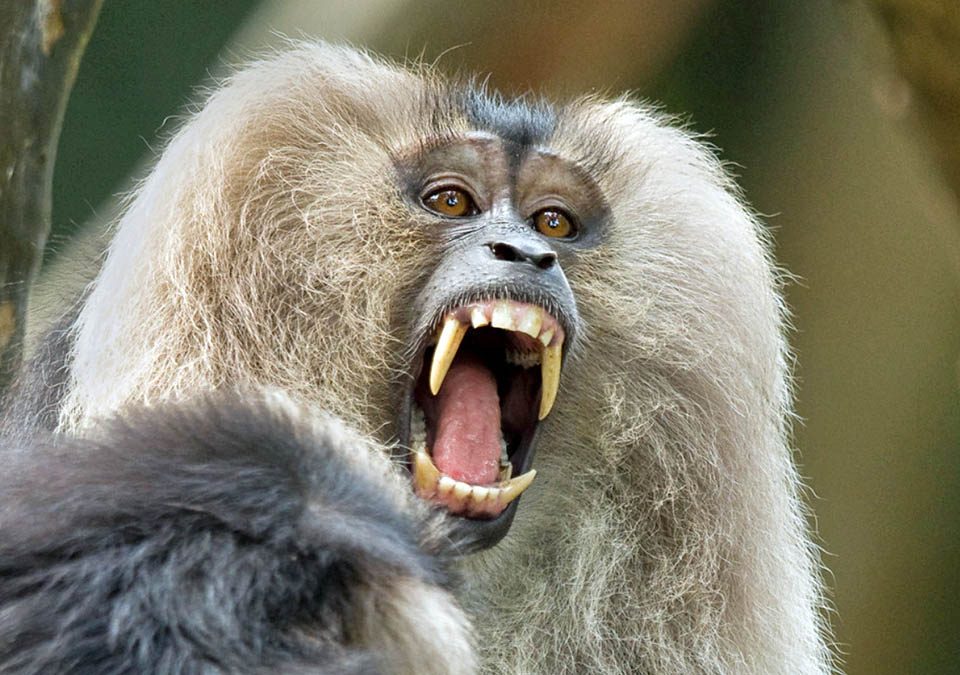
Macaca silenus con vistosi canini. La bocca è solitamente provvista di un numero definito di denti impiantati in alveoli della mascella e della mandibola © Benny Ng
Apparato boccale
La bocca dei mammiferi è in genere contornata da labbra carnose, variamente sviluppate.
La volta boccale è composta dal palato secondario, che nella sua parte anteriore è sostenuto dai processi mascellari e dai palatini (palato duro), mentre in quella posteriore manca del supporto osseo (palato molle): ciò consente la respirazione anche durante l’alimentazione.
I due rami della mandibola sono costituiti da un solo osso ciascuno (dentale) e si articolano direttamente con l’osso squamoso del cranio, diversamente dai Rettili nei quali tale articolazione si realizza con il tramite di altre ossa. Nella parte anteriore della mandibola, i due dentali sono uniti tramite legamenti, cartilagine o sinostosi.
La cartilagine di Meckel, scompare quasi completamente e in genere è compresa nell’orecchio medio dando origine ad uno degli ossicini dell’apparato uditivo, il martello.
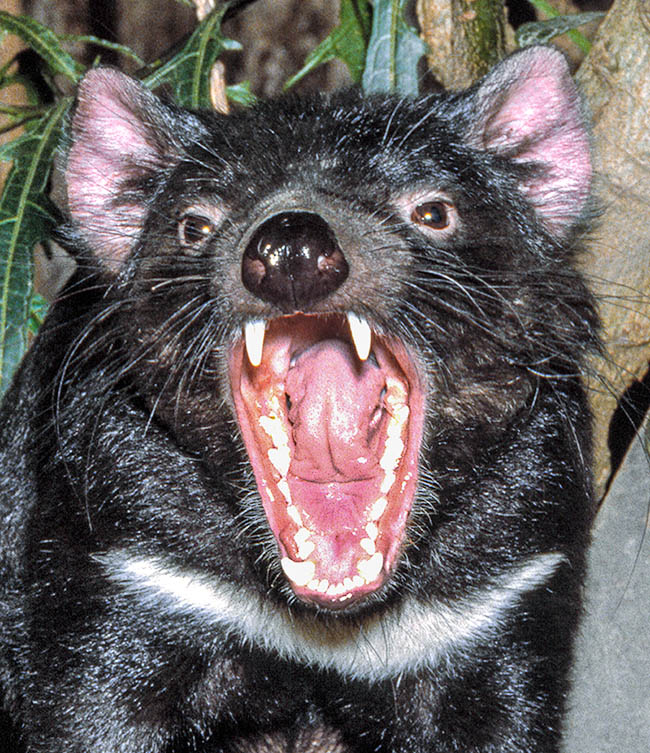
I marsupiali ne contano anche 56. Qui il feroce Diavolo della Tasmania (Sarcophilus harrisii) © Giuseppe Mazza
All’interno della bocca si aprono i dotti delle ghiandole salivari (paratiroidi, sottolinguali, sottomascellari, infraorbitali); molto sviluppate negli erbivori, queste ghiandole sono ridotte nei carnivori, mentre mancano nelle forme che vivono in ambiente acquatico.
La bocca è solitamente provvista di un numero definito di denti (fino a 56 nei Marsupialia) che si impiantano in alveoli sulla mascella e sulla mandibola (dentatura tecodonte).
Il marcato differenziamento dei denti (eterodontia), in forma e dimensioni, nelle varie sedi delle arcate dentarie, riflette una loro specializzazione funzionale; infatti, in gran parte dei mammiferi sono riconoscibili 4 tipi di denti: gli incisivi, posti anteriormente, idonei a mordere e a tagliare; i canini, lunghi e appuntiti, atti ad afferrare e perforare; i premolari e i molari hanno la corona conformata per la triturazione del cibo.
La dentatura delle varie specie di mammiferi viene comunemente espressa mediante una formula dentaria, rappresentata da una frazione al cui numeratore vengono indicati i denti dell’emiarcata superiore, al denominatore quelli dell’emiarcata inferiore secondo l’ordine: incisivi, canini, premolari e molari.
Una dentatura che presenta tutte e quattro le categorie di denti sopra menzionati è detta completa.
Allorché la riduzione numerica dei denti si accompagna alla scomparsa di una o più di queste categorie, la dentatura viene chiamata incompleta; in questo caso, lo spazio (o gli spazi) privo di denti che esiste nelle arcate dentarie è detto diastema.
I casi di denti tutti uguali tra loro (omodontia), come accade nei Cetacea Odontoceti, come pure quelli di riduzione o di totale scomparsa dei denti, come avviene negli Armadilli, Formichieri e Bradipi, per tale motivo detti Sdentati, Edentati o Maldentati, sono acquisizioni evolutive secondarie, conseguenza di adattamenti a regimi alimentari particolari.
In alcuni mammiferi, come nell’Ornitorinco e nell’Echidna (Monotremata) e nelle Balene (Cetacea), i denti si riscontrano solo nei giovani, mentre gli adulti presentano rispettivamente un becco corneo e fanoni , strutture cornee laminari sospese ai mascellari.
La maggioranza dei mammiferi nel corso del ciclo vitale presentano due dentizioni (difiodonti), una prima dentizione giovanile, temporanea o caduca (dentizione del latte), ed una seconda, dentizione definitiva o permanente.
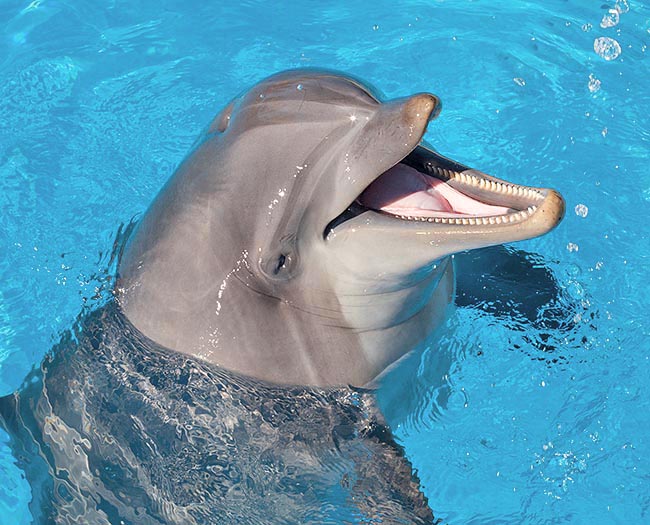
Tursiops truncatus ha circa 18-26 paia di denti conici per mascella. Non servono a masticare ma ad afferrare le prede © Giuseppe Mazza
In ogni caso però, i molari sono esclusivi della seconda dentizione.
In alcune specie, la scomparsa di una delle due dentizioni (latteale o definitiva) è conseguenza del passaggio da una primitiva condizione a due dentizioni (difiodonte) ad una secondaria condizione nella quale si verifica una sola eruzione dentaria (monofiodentia); tale situazione si osserva nei Cetacea Odontoceti.
In genere i denti sono a crescita definita, però alcune specie della classe hanno dentizione a crescita continua nei quali il dente si consuma nella sua porzione libera mentre si accresce alla base.
Sono a crescita continua gli incisivi dei Rodentia (topi, ratti, scoiattoli, driceti, porcellini d’India, castori, marmotte, nutrie e istrici, etc.) e dei Lagomorpha (conigli e lepri).
Anche i canini dei Suidae (maiali, cinghiali, facoceri, babirussa) e gli incisivi superiori degli Elephantidae (elefanti) sono trasformati in zanne variamente sviluppate, in genere maggiormente nei maschi.
I canini dell’Ippopotamo (Hippopotamus amphibius Linneo, 1758) sono aguzzi e taglienti e, sporgono verso l’esterno, costituendo un’arma temibile.
Dotati di crescita continua, nei maschi dell’Ippopotamo i canini possono misurare anche 50 centimetri di lunghezza per un peso di 3 kg, mentre nelle femmine sono decisamente più piccoli e in genere pesano 1 kg.
I canini del Tricheco (Odobenus rosmarus Linneo, 1758) sono molto allungati e nei maschi possono raggiungere anche un metro di lunghezza e superare i 5 kg di peso.
La lingua, situata sul pavimento boccale, è un organo muscolare più frequentemente mobile e si presenta varia per forma e grandezza nei diversi gruppi.
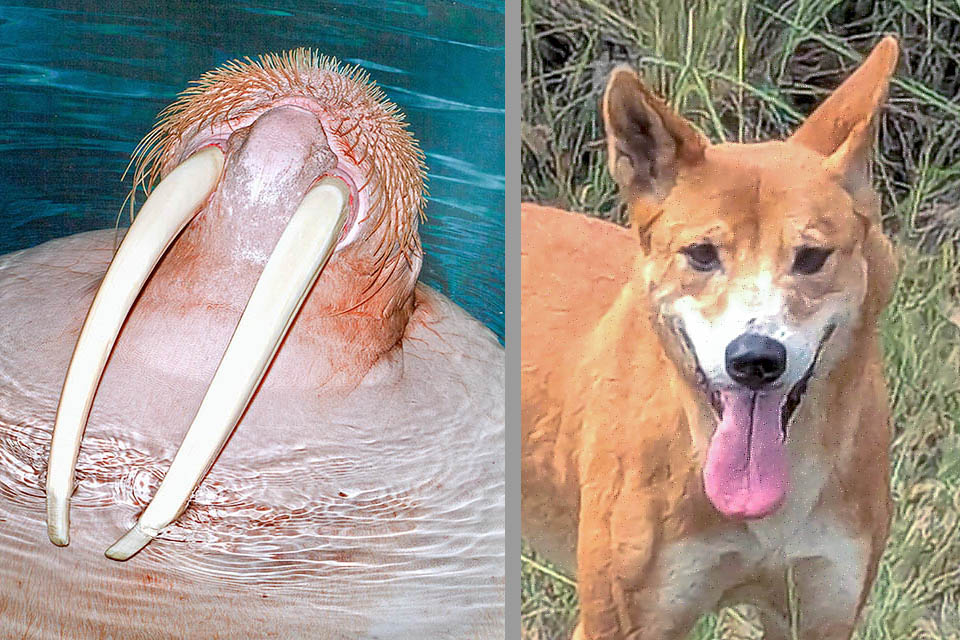
Dalla bocca del Tricheco (Odobenus rosmarus) spuntano denti smisurati; la lingua dei cani, qui un Canis lupus dingo, può penzolare anche con funzione di termoregolazione. © Giuseppe Mazza (sinistra) © jonathon love (destra)
Diverse specie mirmecofage, come il Formichiere gigante (Myrmecophaga tridactyla Linneo, 1758), noto anche come Orso delle formiche, sono dotate di una lingua lunga e appiccicosa in relazione alla dieta alimentare costituita da Formiche e Termiti di cui si cibano in grande quantità.
La superficie della lingua dei Mammiferi è ricoperta da papille gustative di vario aspetto (corolliformi, filiformi, foliate, ecc.) che ne fanno un organo molto versatile atto al tatto, gusto e deglutizione.
In parecchie specie zoofage, la lingua è provvista di papille ruvide utilizzate in particolare per la pulizia.
Diverse specie, come Cani e Lupi (Canidae), ansimando, utilizzano la lingua anche come organo di termoregolazione.
Corna
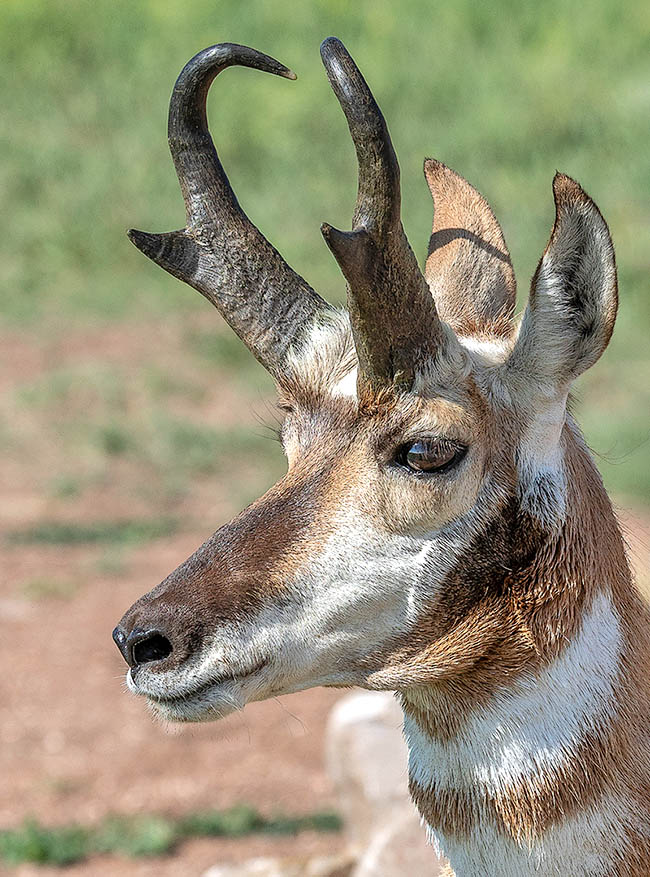
Le corna hanno forme varie, spesso diverse nei due sessi o esclusive dei maschi. In Antilocapra americana quelle bifide del maschio sono rivestite da un astuccio corneo che si rinnova ogni anno su un nucleo osseo permanente © bwood708
Alcuni mammiferi portano sul capo sporgenze ossee, dette corna, che possono essere uno o due impari come nei rinoceronti (Rhinocerotidae) o, più frequentemente un paio (Cervidae, Bovidae) ed altri.
Soltanto il maschio dell’Antilope (Tetracerus quadricornis Blainville, 1816) è armato di 2 coppie di corna.
A seconda della specie, le corna hanno conformazione varia (semplici, ramificate, lisce, anellate) e spesso diverse nei due sessi o esclusivi dei maschi ed aventi funzioni difensive e offensive.
I rinoceronti sono armati di uno o due corna mediane che poggiano su un rilievo osseo del setto nasale e che sono ritenute omologhe a peli fusi intimamente.
Nei Cervidae le corna sono ramificate e si originano a partire da tessuto connettivale denso sulle bozze delle ossa frontali del cranio.
Nella maggior parte delle specie le corna rappresentano un carattere sessuale secondario esclusivo dei maschi e generalmente sono caduche, poiché alla fine di ogni stagione riproduttiva cadono per rigenerarsi nell’anno successivo.
Invece, nella famiglia dei Bovidae (Antilopi, Capre, Pecore, Buoi, ecc.) le corna non sono caduche e sono costituite da un astuccio corneo persistente, di origine epidermica, che ricopre una parte centrale di tessuto ossificato originatosi per proliferazione delle ossa frontali. Le corna così fatte sono dette pertanto cave e di norma sono presenti in entrambi i sessi e non sono ramificate.
Ed ancora, le corna sono ad accrescimento continuo e nelle specie viventi in regioni caratterizzate da un marcato ciclo stagionale presentano anelli di accrescimento in relazione con le stagioni dell’anno.
Nell’Antilocapra (Antilocapra americana Ord, 1815), unico rappresentante degli Antilocapridae, le corna, bifide nel maschio, sono formate da un processo osseo perenne ricoperto da un astuccio corneo caduco che si rinnova ogni anno.
Nelle Giraffa (Giraffidae) le corna sono molto corte e sempre rivestite da pelle sulla quale si impiantano numerosi peli.
COLLO
Nei Mammiferi, il collo è la parte anatomica che collega il capo al tronco e che contiene importanti organi vitali come trachea ed esofago. Il collo esercita un ruolo basilare nel supporto del capo, consentendone la mobilità e favorendone funzioni essenziali come la respirazione, la comunicazione e la deglutizione.
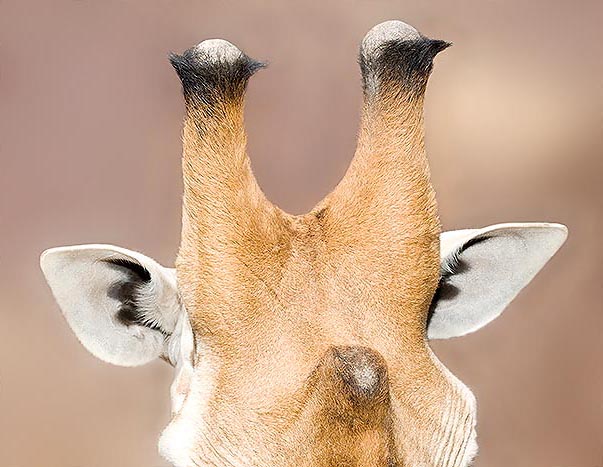
Nelle Giraffe le corna sono molto corte, sempre ricoperte dalla pelle con numerosi peli © Giuseppe Mazza
In genere il collo è ben distinto e maggiormente sviluppato nelle forme erbivore, come si osserva nei Cervidae, nei Bovidae e negli Equidae, o addirittura notevolmente allungato come nei Giraffidae.
Diversamente, il collo si presenta ridotto o poco evidente in quelle acquatiche (Cetacea) e in quelle fossorie (Talpidae).
Caratteristica di quasi tutti i Mammiferi è il supporto scheletrico del collo costituito da sette vertebre cervicali indipendentemente dalla sua lunghezza.
In poche specie, come Bradipi tridattili (Bradypus), il collo contiene 8-9 vertebre cervicali, mentre i Bradipi didattili (Choloepus) ne hanno da 5 a 7, permettendo loro una rotazione del collo fino a 270°-360° per difendersi. I Lamantini (Trichechus) hanno 6 vertebre cervicali.
TRONCO
Nei Mammiferi, il tronco è la regione del corpo ai cui lati sono disposti simmetricamente un paio di arti anteriori e un paio di arti posteriori.
Dal punto di vista morfologico, il tronco dei Mammiferi è di aspetto molto vario, da lungo e snello, come nei Mustelidae, a tozzo e massiccio come negli Hippopotamidae, nei Rhinocerotidae, ed altri ancora.
A sua volta il tronco dei Mammiferi è ripartito in torace, addome, bacino, comprese le principali cavità corporee in cui sono contenuti i visceri. La comparsa del muscolo diaframmatico, esclusivo dei Mammiferi, suddivide la cavità interna in cavità toracica, anteriore, e cavità addominale, posteriore.
Nel corso del percorso evolutivo dei Mammiferi, la struttura scheletrica e muscolare del tronco ha subito modifiche anche sostanziali consentendo da una parte un corretto sostegno degli organi interni e dall’altra la capacità di spostamenti rapidi anche ad animali con mole corporea considerevole.
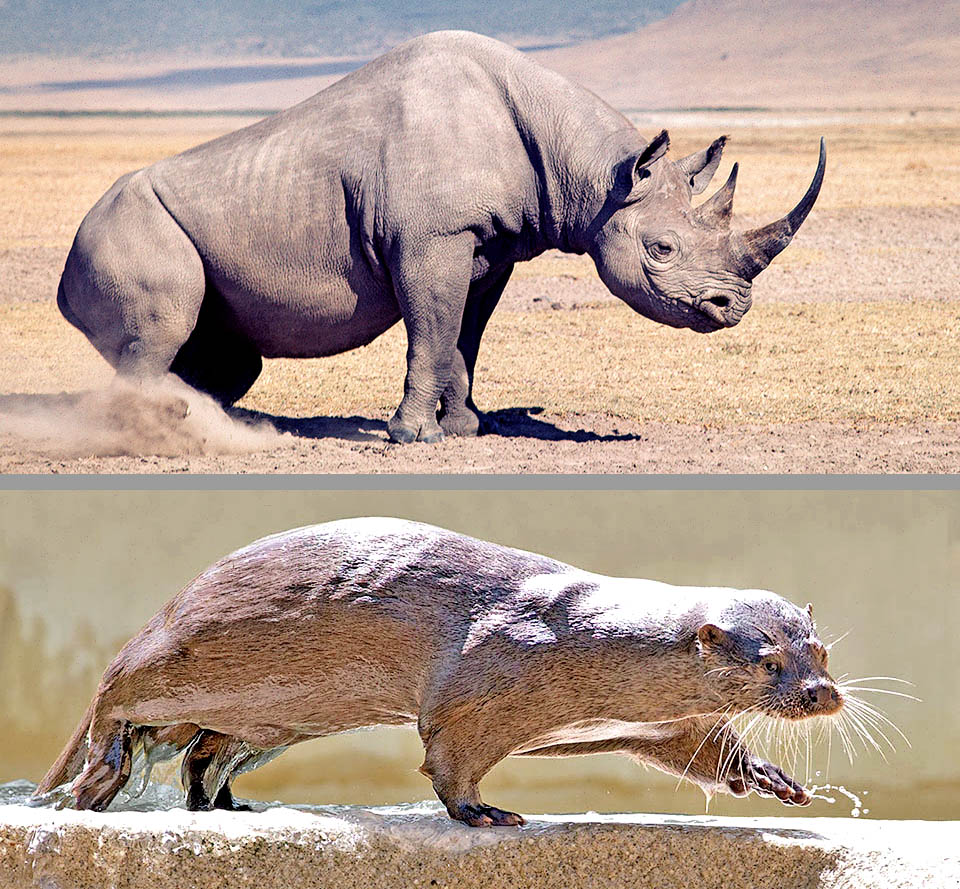
Il tronco dei mammiferi può essere tozzo e massiccio come in Diceros bicornis o snello, come in Lutra lutra © Giuseppe Mazza
Ciò è stato possibile con la comparsa delle coste e dei muscoli addominali robusti nei Vertebrati terrestri e la specializzazione del cinto scapolare e del cinto pelvico che consentono adeguata connessione e mobilità degli arti rispetto allo scheletro assiale.
Inoltre, il passaggio da un’andatura quadrupede, pronograda, tipica di molti Mammiferi, a una andatura bipede, ortograda, propria di alcuni Hominidae, è stato possibile anche dalla progressiva verticalizzazione del tronco rispetto agli arti, con adattamenti a carico della colonna vertebrale, del cinto pelvico e del cinto scapolare. Ciò ha anche consentito di muovere anche movimenti di adduzione, abduzione e rotazione degli arti.
CODA
La coda si presenta molto varia per sviluppo, forma e funzioni; può essere ricca di peli (Scoiattoli, Cavalli, ecc.) oppure nuda (Topi). Negli Ungulati, la coda è generalmente lunga e apicalmente provvista di peli ispidi, utile per scacciare gli insetti molesti.
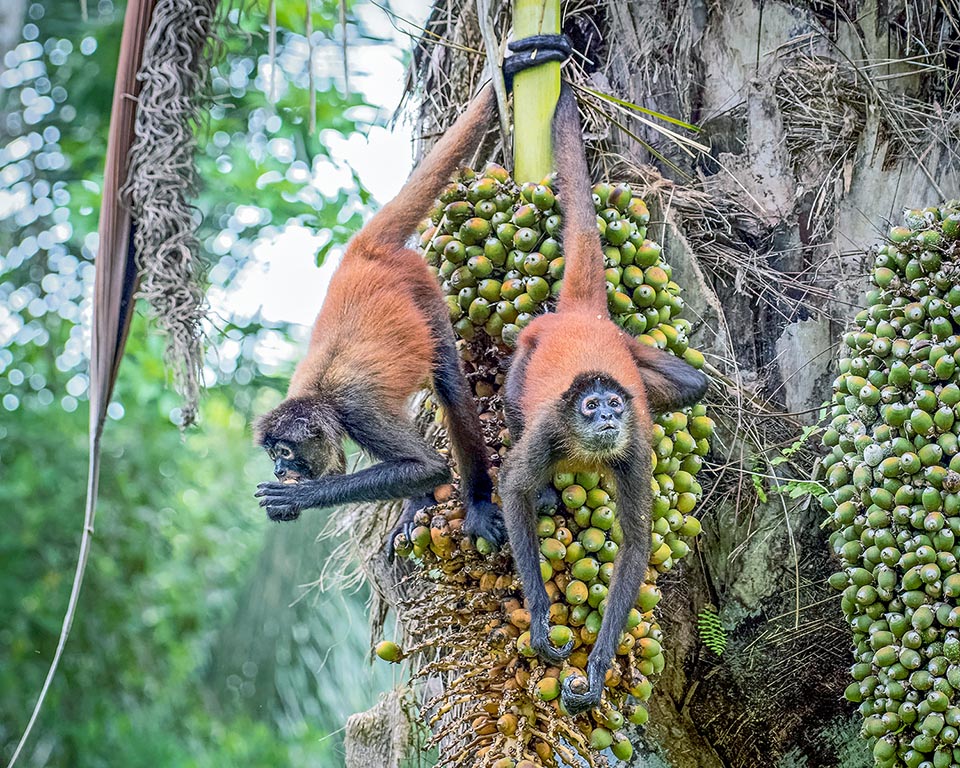
La coda, talora assente, ha forme molto varie: ricca di peli o nuda come nei topi. Nei castori serve da timone e in alcune scimmie è prensile © Tony-tickspics.com
In alcuni casi la coda è appiattita ed utilizzata come timone, come nei Castori e nei Cetacea, oppure compressa lateralmente come nel Topo muschiato (Ondatra zibethicus Linneo 1766). Gli Opossum, marsupiali americani Didelphidae, ed alcune Scimmie sono provvisti di una coda lunga e prensile che usano per afferrarsi ai rami.
In alcune specie, come nei Canguri (Macropodidae), la coda è molto forte e sviluppata, tanto da riuscire a sostenere l’intero peso del corpo.
In altri Mammiferi la coda è poco sviluppata, come in Opossum dalla coda corta (Monodelphis Burnett, 1830), Mangusta dalla coda corta (Herpestes brachyurus Gray, 1837), Conigli (Oryctolagus cuniculus Linneo, 1758) ed altre ancora.
Infine, alcuni Mammiferi, come Scimmie antropomorfe (Gorilla, Scimpanzé) e Uomo, hanno un residuo vestigiale o mancano del tutto di coda (anuri).
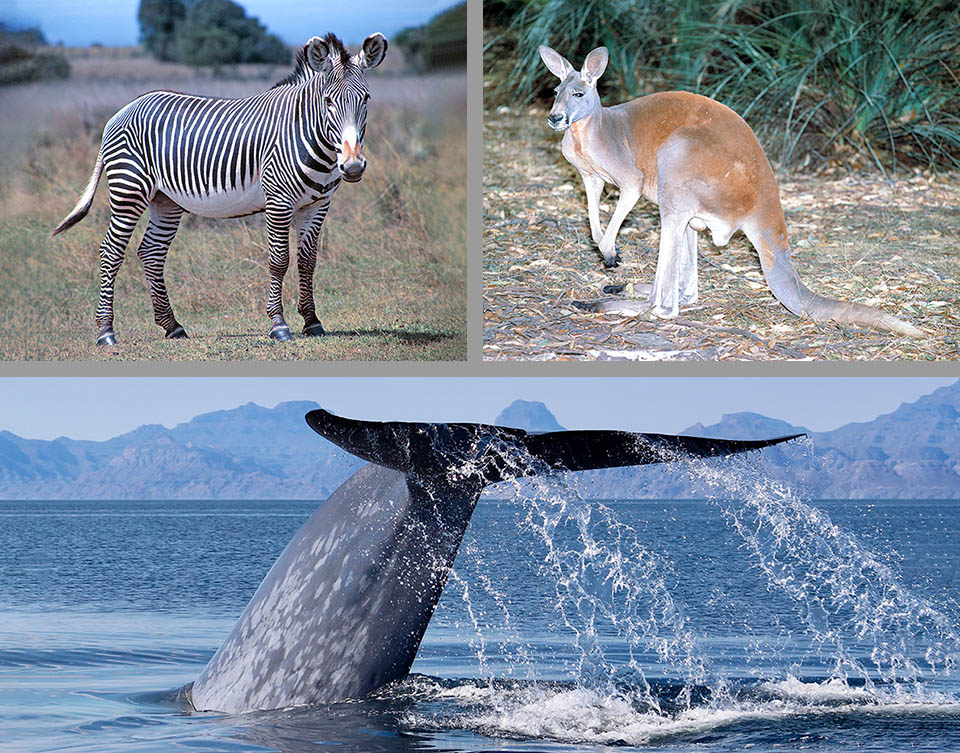
I mammiferi sono dotati in genere di 4 arti, usati per correre come Equus grevyi, saltare come Macropus rufus o nuotare, trasformati in pinne, come Balaenoptera musculus. © Giuseppe Mazza (in alto) © Roger Proudfoot (in basso)
ARTI
Caratteristica che accomuna quasi tutti i Mammiferi è la presenza di due paia di arti molto vari per forma e sviluppo, da cui anche il nome della superclasse di appartenenza i Tetrapoda.
Gli arti dei Mammiferi, comunemente detti zampe, sono specializzati per la deambulazione, la corsa, il salto o il nuoto o in minor misura il volo. Oltre che per la struttura ossea di base, le zampe della maggior parte dei Mammiferi hanno la caratteristica di avere le estremità con cinque dita, Pentadattilia, caratteristica primitiva condivisa con molti vertebrati di abitudini terrestri.
Fanno eccezione i rappresentanti delle famiglie Suidae e Hippopotamidae che hanno 4 dita, mentre Bovidae, Cervidae, Giraffidae e Camelidae che ne presentano due. Lunghe ed agili, come nei Cervi, Antilopi, Gazzelle, le zampe sono enormi e molto tozze, come negli Elefanti e negli Ippopotami.
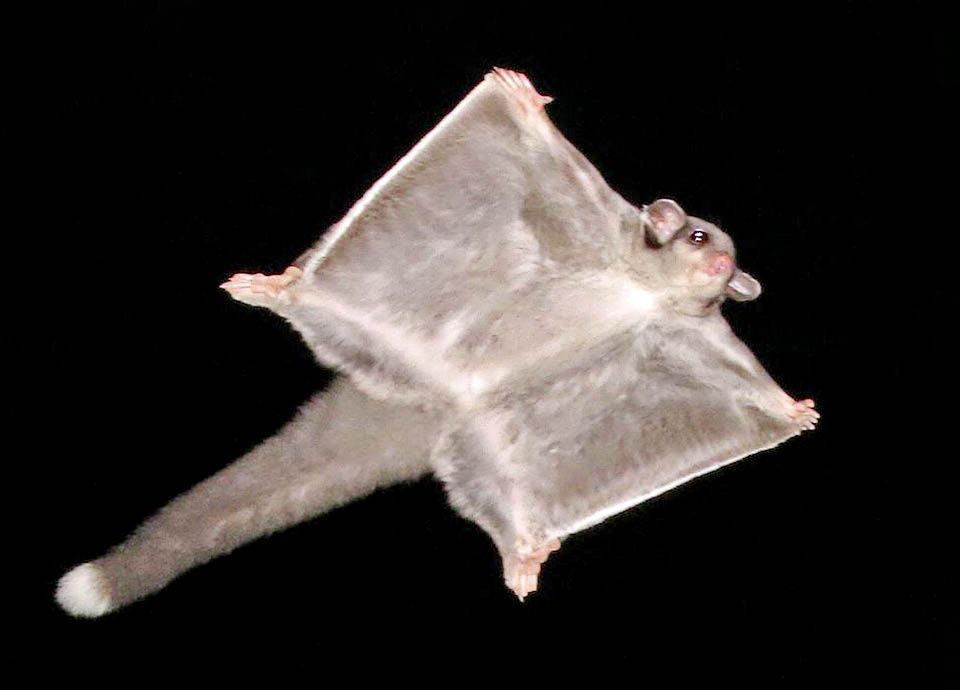
I pipistrelli volano stendendo il loro patagio, una sottile membrana cutanea posta fra gli arti. Lo stesso fanno, planando, alcuni marsupiali come questo Petaurus breviceps © Ian D B Moodie
Canguri, Ratti canguro, Lepri ed altri Mammiferi hanno le zampe posteriori notevolmente più robuste e più sviluppate delle anteriori, adatte al salto. In relazione al loro habitat sotterraneo, le Talpe hanno le zampe corte e con le piante larghe atte allo scavo.
Marcato differenziamento evolutivo degli arti si osserva in Balene e Delfini (Cetacea), Dugongo (Dugong dugon Müller, 1776) e Lamantini (Trichechus Linnaeus, 1758) dell’ordine dei Sirenia, in cui le zampe anteriori sono trasformate in pinne pettorali, mentre quelle posteriori sono ridotte a piccole ossa vestigiali interne.
Nei Pipistrelli (Chiroptera) gli arti anteriori si sono specializzati per il volo attivo con le dita estremamente allungate, dal secondo al quinto dito, che sottendono una sottile membrana cutanea, il cosiddetto patagio, che si estende lungo il corpo, gli arti posteriori e frequentemente anche la coda. Oltre che come organo di volo, il patagio funziona anche come struttura di termoregolazione, grazie ad una ricca rete di vasi sanguigni.
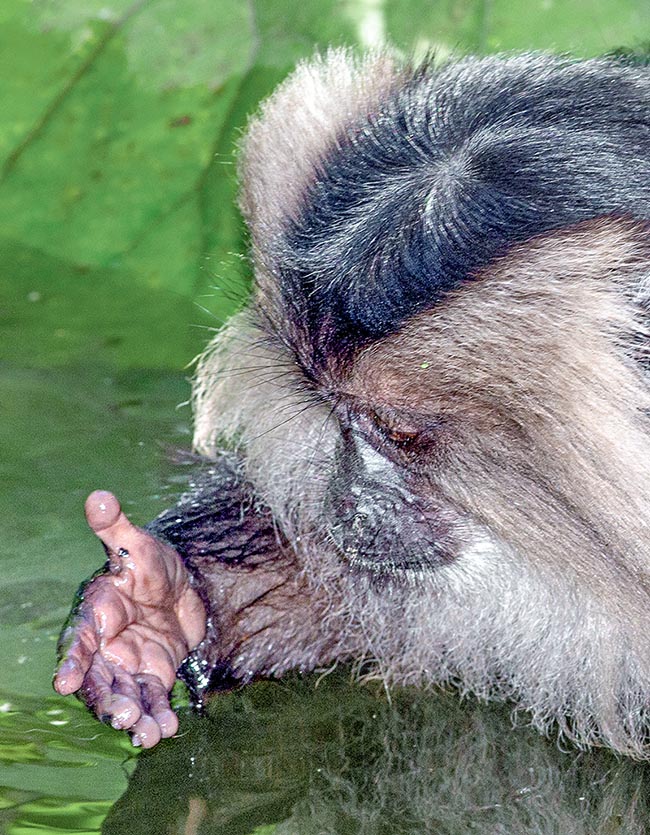
La mano, qui osservata da un Macaca silenus, ha 5 dita molto simili a quelle umane © Giuseppe Mazza
I piedi, provvisti di norma di 5 dita, talora meno, hanno una struttura che varia a seconda del tipo di locomozione, risultando atti alla corsa, all’arrampicamento, al nuoto, al volo, allo scavo.
Nei Mammiferi corridori si osserva un restringimento e un allungamento del piede, nonché della riduzione del numero delle dita.
La pianta dei piedi manca generalmente di peli ed è provvista di uno spesso strato corneo, in particolare a livello dei cuscinetti carnosi o polpastrelli.
Le dita sono dotate di formazioni dermiche corneificate, le unghie, nelle loro diverse forme di artigli o falcule, zoccoli o ungule, unguicole o unghie laminari. Di norma, le unghie sono a crescita continua.
Il modo di spostarsi sulla terraferma dei Mammiferi è molto vario e, a seconda del tipo di locomozione si distinguono: i Plantigradi, che, come l’Orso camminano appoggiando tutta la superficie plantare e palmare, i Digitigradi, che si muovono poggiando solo sulle dita (come per es. i Canidi.
I Mammiferi che camminano sulla punta delle dita, protette da forti unghie e zoccoli sono detti Unguligradi.
A seconda se l’appoggio sul terreno è effettuato sulla punta di un numero pari di dita oppure su un numero dispari, gli Unguligradi vengono distinti in Artiodactyla (Cammelli, Antilopi, Maiali, ecc.) e Perissodactyla (Elefanti, Rinoceronti, Cavalli ecc.).
ORGANI DI SENSO
Vista
Gli occhi, in numero di un paio, sono di norma protetti da due palpebre mobili, una superiore e l’altra inferiore, marginate di ciglia. In alcune specie, come Gatti, Orso polare, Castori, Foche, Trichechi, Oritteropo, è presente anche una “terza palpebra”, la membrana nittitante, che, a differenza delle altre due, si muove in senso orizzontale. La membrana nittitante è trasparente e serve a proteggere l’occhio e nel contempo di consentire la visione e l’orientamento allorché l’animale è in immersione. Nella maggior parte dei Mammiferi, uomo compreso, la membrana nittitante è ridotta a un piccolo residuo vestigiale posto all’angolo interno di ciascun occhio (plica semilunaris).
Le dimensioni degli organi della vista sono molto varie, da molto grandi nelle specie che conducono vita notturna, come in diverse Proscimmie (Prosimiae), a molto ridotte nelle forme fossorie, a vita ipogea, quali Talpe, Topiragno (Insectivora) e Talpe marsupiali o Notoritte (Notoryctes Stirling, 1891).
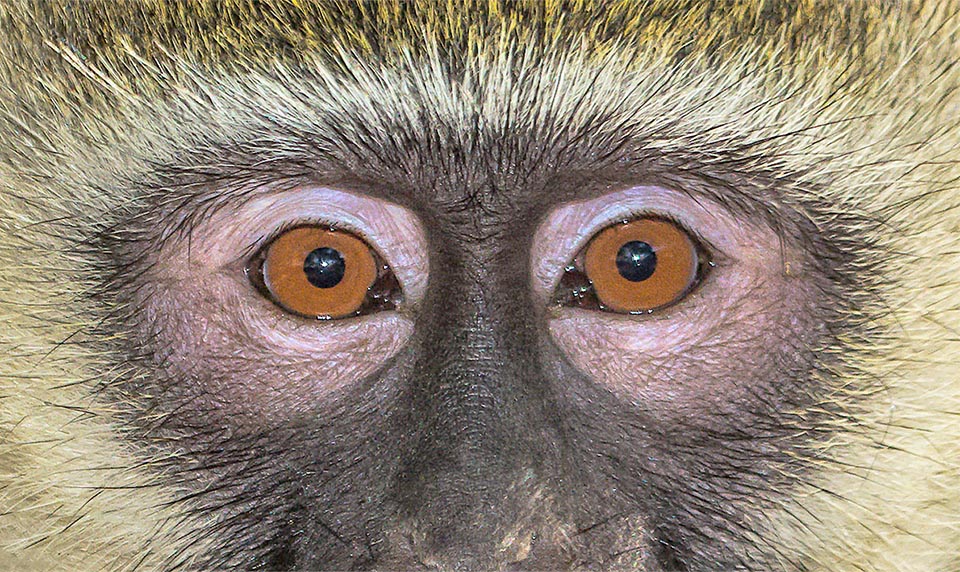
Impiantati lateralmente negli erbivori per avvistare i predatori, nei pipistrelli, carnivori e primati gli occhi sono frontali per la visione binoculare della profondità © Rafi Amar
Impiantati lateralmente sul capo, come nelle specie che si nutrono di erbe, gli occhi permettono di avvistare da entrambi i lati eventuali nemici e predatori, mentre disposti in posizione anteriore, (Chiroptera, Carnivora e Primates) consentono una visione binoculare, indispensabile per la percezione della profondità.
La struttura degli occhi è chiaramente simile a quella degli altri Vertebrati; la sclerotica però non è ossificata, ma è formata da tessuto fibroso denso ed è priva di pettine, che è invece presente nei Rettili e negli Uccelli. La pupilla si contrae in una fessura verticale nei Felidi e orizzontale negli Ungulati.
Quello della vista non è il senso più importante nei Mammiferi, anzi solo un numero ridotto di essi sono in grado di vedere perfettamente anche oggetti immobili. La facoltà di percepire i colori in molti rappresentanti di questa classe è di gran lunga inferiore a quella di molti Pesci e Rettili e della quasi totalità degli Uccelli. Le Scimmie antropomorfe e in maggior misura l’Uomo (Hominidae) sono perfettamente recettivi ai colori.
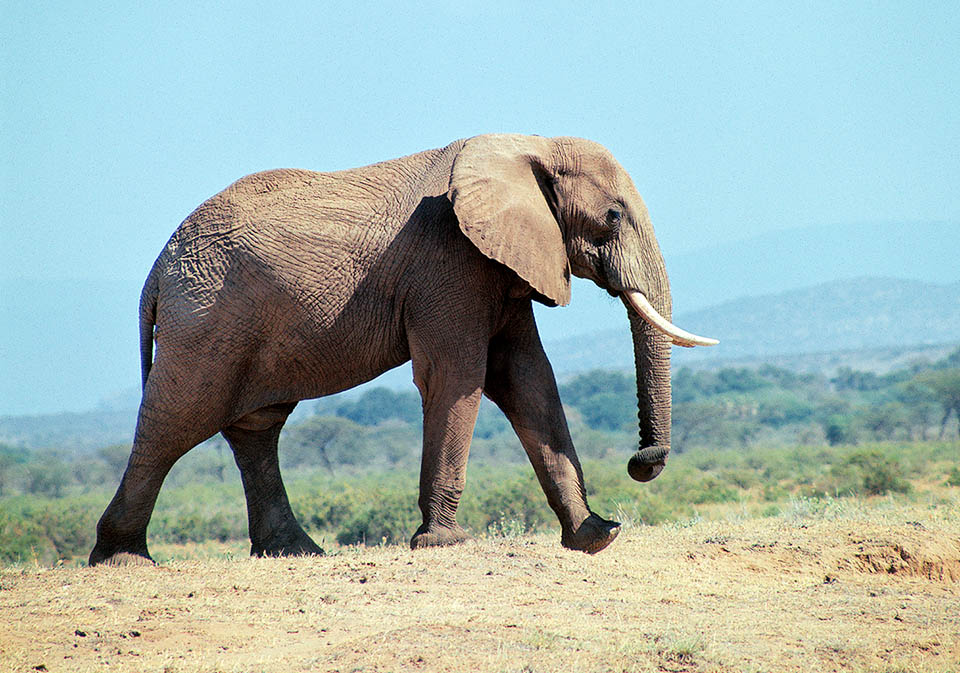
Loxodonta africana. Il mammifero con l’olfatto più sviluppato è l’elefante. Nelle specie acquatiche le narici si sono trasformate in uno sfiatatoio posto alla sommità del capo © Giuseppe Mazza
Olfatto
Le narici solitamente si aprono all’estremità anteriore del capo, ma nelle forme acquatiche possono essere spostate più indietro, in posizione dorsale.
Diverse specie, quali Balene, Delfini, Orche (Cetacea), Lamantini e Dugonghi (Sirenia) hanno narici che si sono evolute in uno sfiatatoio posto sulla sommità del capo; tale adattamento alla vita acquatica consente a questi Mammiferi di poter respirare nuotando in superficie, così come Cammelli e Dromedari sono in grado di chiudere le narici per proteggerle dalla sabbia. Inoltre, la presenza di alcune sacche sotto lo sfiatatoio consentono ai Cetacea di orientarsi e di cacciare, emettendo suoni e interpretando gli echi di ritorno al pari di un vero e proprio sonar biologico. Tipicamente, nei Mammiferi il naso è sorretto dalle ossa nasali e da cartilagini; talora la massa carnosa può formare una lunga proboscide come negli elefanti. Il senso dell’olfatto è particolarmente sviluppato in alcuni Mammiferi, soprattutto in relazione alle abitudini alimentari.
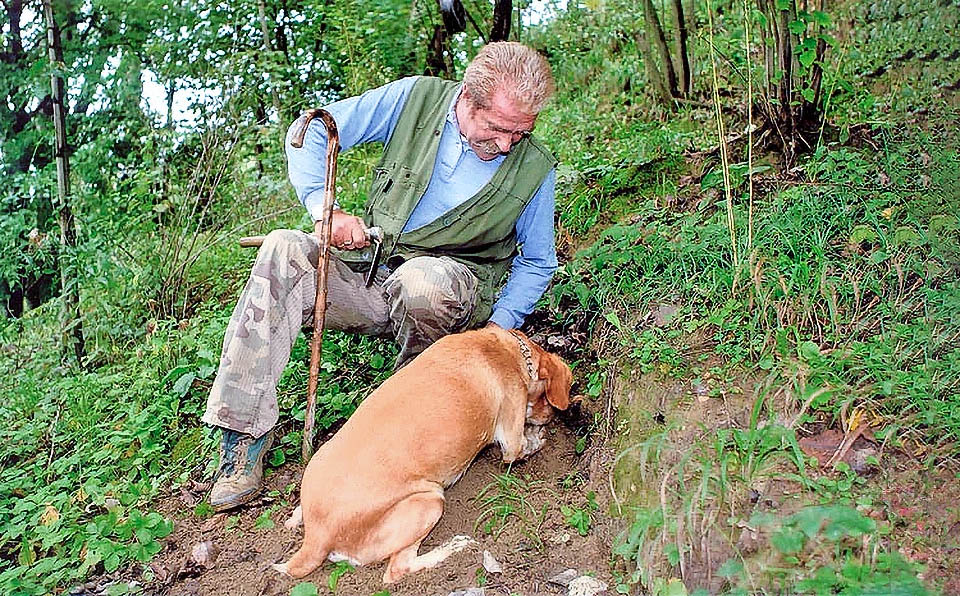
Il cane, meno ingombrante e con 200-300 milioni di recettori olfattivi, è molto usato dall’uomo che può contare solo su 5-6 milioni di recettori. Qui ha scovato un tartufo © Tartuflavio
Le specie predatrici utilizzano l’olfatto per seguire il percorso della preda, mentre quelle che si cibano di vegetali impiegano questo senso come un efficace mezzo per individuare tempestivamente la presenza di un nemico. In molti rappresentanti della classe dei Mammiferi, l’olfatto svolge un ruolo primario nella vita di comunità e nei rapporti sessuali. In queste forme fornite di un olfatto molto acuto (macrosmati), le cavità nasali sono piuttosto sviluppate e internamente presentano una lamina mucosa con molte pliche e ricca di cellule fusiformi. Nelle specie di Mammiferi in cui l’olfatto è scarsamente sviluppato (microsmati), come per es. l’uomo, le cavità nasali sono ridotte e le lamine mucose mancano di pliche; infine, animali che, come le Balene, hanno perduto del tutto questo senso sono detti anosmati.
Udito
L’organo dell’udito dei Mammiferi, orecchio, è fondamentalmente deputato alla percezione dei suoni e alla localizzazione della fonte che li produce.
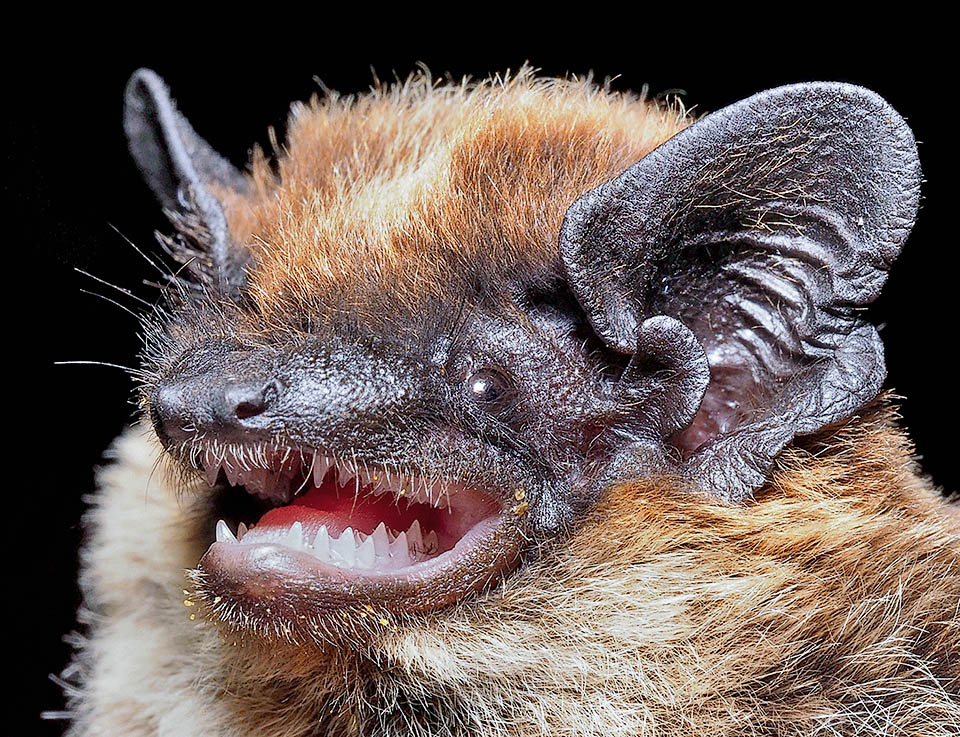
Hypsugo savii. I pipistrelli primeggiano nell’udito, rilevando ostacoli e piccole prede con gli echi di ritorno di ultrasuoni emessi ad altra frequenza, impercettibili all’uomo © Jakob Fahr
L’orecchio possiede anche l’importante funzione di rilevare informazioni relative alla posizione e al movimento del corpo nello spazio, al fine di mantenere la postura e permettere la coordinazione del movimento.
Grazie a un orecchio molto specializzato, i Mammiferi sono dotati di capacità uditive eccezionali, in grado di percepire suoni di intensità molto debole, appena pochi decibel per molte specie tra cui anche Cane e Gatto.
Anche lo spettro di frequenza rilevabile varia dai suoni molto bassi, sino a 20 Hz (infrasuoni), a quelli molto elevati, anche oltre i 150 mil Hz (ultrasuoni).
Diversi Mammiferi, quali Pipistrelli, Delfini, Orche ed altri sono in grado percepire l’ambiente e di orientarsi, individuando ostacoli e prede, emettendo ultrasuoni e di valutarne gli echi di ritorno (biosonar). Le balene, in particolare le balene grigie e le balene azzurre, per comunicare emettono infrasuoni che possono viaggiare per centinaia di chilometri.
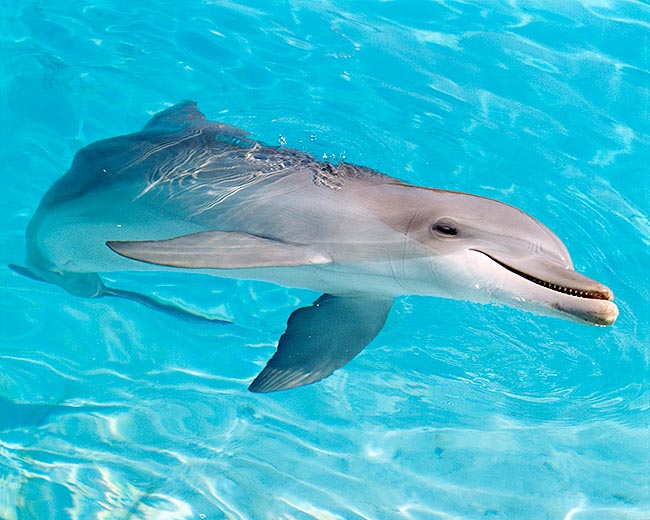
Tursiops truncatus. Anche i delfini possiedono un udito eccezionale e si affidano all’ecolocalizzazione per orientarsi e cacciare. Le orecchie esterne sono ridotte a minuscole aperture auricolari poste ai lati del capo e quasi invisibili © Giuseppe Mazza
Situato simmetricamente ai lati del capo, posteriormente all’articolazione della mandibola e anteriormente al processo mastoideo, l’organo uditivo viene suddiviso in orecchio esterno, medio e interno.
L’orecchio esterno è la parte visibile dell’organo ed è detto padiglione auricolare, formato principalmente da una lamina cartilaginea ricoperta di pelle e a forma di conchiglia. Ciascun padiglione auricolare svolge l’importante funzione di raccogliere e convogliare le onde sonore all’interno del condotto uditivo verso il timpano.
La posizione dei due padiglioni auricolari consente di captare il suono in maniera stereoscopica e di localizzarne quindi la provenienza. Il padiglione auricolare è particolarmente mobile in molte specie, come Cani e Gatti, che possono ruotarlo sino a 180°. Nell’Uomo, pur essendo ridotto e scarsamente mobile, il padiglione auricolare è comunque in grado di assicurare all’udito capacità stereoscopiche. Il padiglione auricolare si riduce e diviene del tutto assente nelle forme scavatrici (Talpe, Citelli, ed altre) e in quelle acquatiche, quali Balene, Foche e Sirenii. Il padiglione auricolare si continua con l’orecchio medio dal quale è separato dalla membrana timpanica (timpano).
L’orecchio medio si caratterizza per la presenza di tre ossicini: il martello e l’incudine, esclusivi dei Mammiferi, e quindi la staffa. Gli ossicini hanno la funzione di trasmettere le vibrazioni della membrana timpanica provocate dalle onde sonore attraverso la finestra ovale, allo scopo di mettere in movimento il fluido che si trova nella coclea dell’orecchio interno, trasducendo così l’energia della pressione esercitata dal segnale sonoro.
L’orecchio interno dei Mammiferi è una struttura complessa scavata nell’osso temporale, formata dal labirinto osseo e dal labirinto membranoso, che nel suo interno contiene un liquido (endolinfa). Il labirinto membranoso è caratterizzato dallo sviluppo della coclea che è spiralizzata, ad eccezione dei Monotremi. In definitiva, l’orecchio interno svolge le funzioni cruciali nella percezione dei suoni (attraverso la coclea) e di equilibrio (attraverso l’apparato vestibolare con canali semicircolari, utricolo e sacculo).
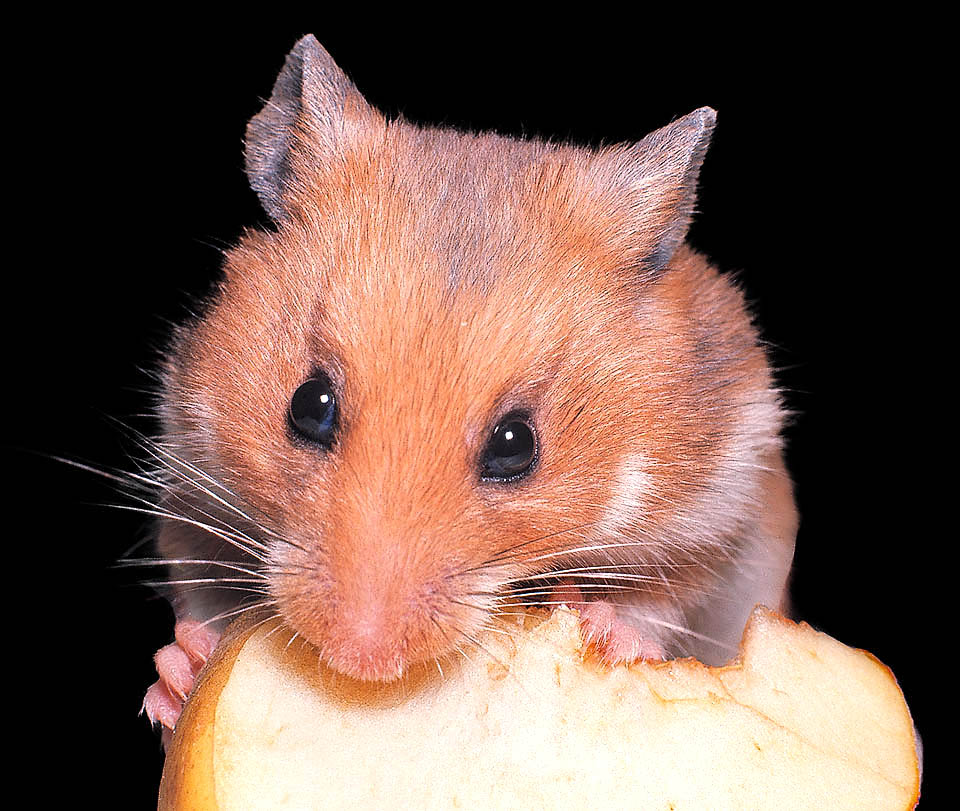
Nei mammiferi l’apparato tegumentario comprende non solo il pelo, ben visibile in questo Mesocricetus auratus, ma anche unghie, artigli e una pelle ricca di ghiandole © Giuseppe Mazza
APPARATO TEGUMENTARIO
L’apparato tegumentario dei Mammiferi, o tegumento, è un organo complesso che riveste l’intero corpo e lo protegge e si caratterizza per i suoi annessi esclusivi della classe come peli, unghie, corna e ghiandole di vario genere (sebacee, sudoripare, mammarie). Il tegumento svolge un ruolo fondamentale per la difesa dagli agenti esterni e la comunicazione sociale.
Peli
Il corpo di gran parte dei Mammiferi è solitamente ricoperto di peli che formano una folta pelliccia. Così come avviene per le penne del piumaggio degli Uccelli, nella pelliccia si distinguono, lunghi e robusti peli setolosi o peli del contorno che costituiscono la cosiddetta giarra, che ricoprono proteggendoli dall’usura i peli lanuginosi, più corti e più sottili, lanugine o borra o sottopelo.
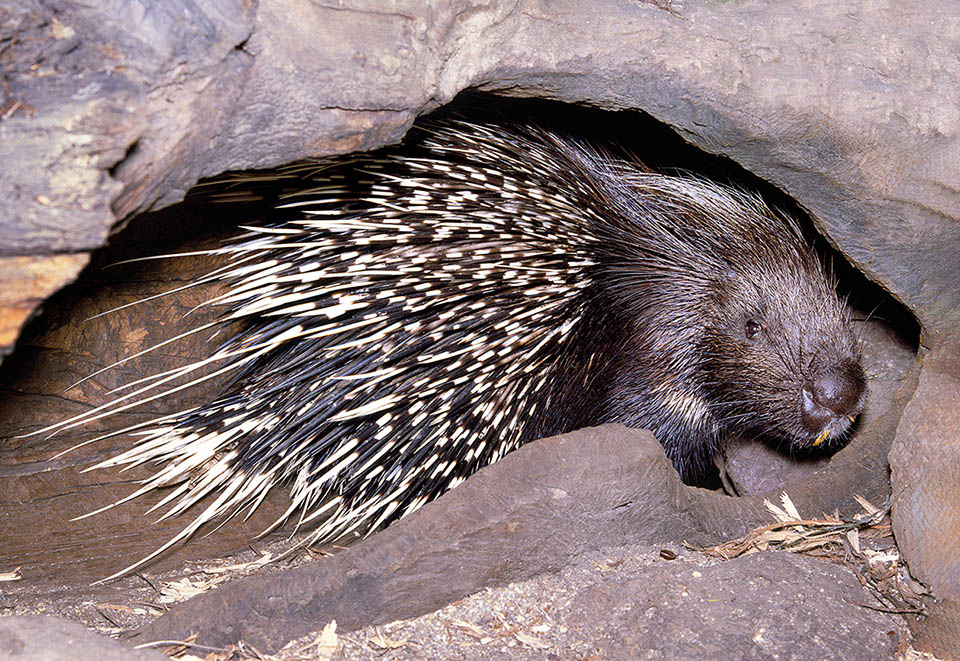
In alcune specie, come l’istrice (Hystrix galeata), il pelo si è trasformato in robusti aculei con funzione difensiva © Giuseppe Mazza
La giarra determina nel suo insieme il contorno del corpo dell’animale, mentre la lanugine svolge la funzione di isolare termicamente il corpo. Detta anche mantello o pelame, la pelliccia dei Mammiferi varia molto per lunghezza, colore, densità e tessitura dei peli. Lunga e fitta in molte specie artiche e di clima freddo, la pelliccia è corta e con peli più sottili in quella dei Mammiferi che vivono in aree tropicali.
In alcune specie però il rivestimento di peli può essere circoscritto ad alcune parti del corpo (come negli Elefanti e nell’Uomo), oppure essere rappresentato da una peluria rada o mancare del tutto, come la Talpa senza pelo (Heterocephalus glaber Ruppel, 1842), alcuni Cetacea, Rinoceronti corazzati, principalmente il Rinoceronte indiano (Rhinoceros unicornis Linneo 1758) ed altri ancora.
Vanno citate alcune razze domestiche di Mammiferi privi di peli come il Canadian Sphynx o Gatto nudo e il Porcellino d’India o Cavia domestica (Cavia porcellus Linneo, 1758), razze derivate da una naturale mutazione genetica. In alcune specie di Mammiferi i peli sono modificati in rapporto alla vita acquatica, quali Cetacea e Pinnipedi.
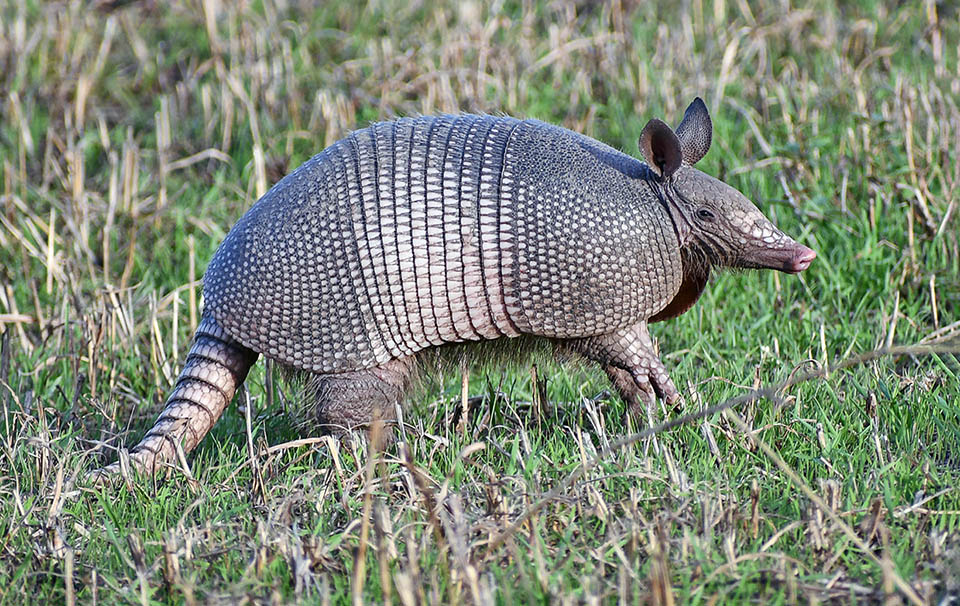
Negli armadilli, come Dasypus novemcinctus, il tegumento forma invece una corazza composta da placche ossee ricoperte di cheratina © Roberto R. Calderón
In diversi mammiferi i peli sono trasformati in rigidi aculei difensivi, quali echidna o formichieri spinosi, monotremi Tachyglossidae originari di Australia e Nuova Guinea, istrici o porcospini del vecchio mondo (Hystrix Linneo, 1758), roditori della famiglia Hystricidae, e ricci (Erinaceus Linneo, 1758).
Tra i mammiferi, i pangolini (Manis Linneo, 1758), conosciuti anche come Formichieri squamosi, si caratterizzano per avere il dorso ricoperto da una corazza di squame cornee epidermiche, disposte in modo da permettere all’animale di appallottolarsi se spaventato.
Anche l’Armadillo comune o Lucilla (Dasypus novemcinctus Linneo,1757), diffuso in America centro-meridionale, presenta il corpo protetto da una corazza articolata di placche epidermiche sostenute da placche ossee. L’Armadillo non è in grado di appallottolarsi.
Squame cornee embricate miste a peli si riscontrano nella coda di molti Marsupialia e di molti Roditori.
Molti mammiferi, attorno alla bocca, al naso e agli occhi, sono provvisti di vibrisse tattili, peli lunghi e rigidi con la base ricca di numerose terminazioni nervose sensitive, strutture che consentono di orientarsi, comunicare e cacciare anche al buio
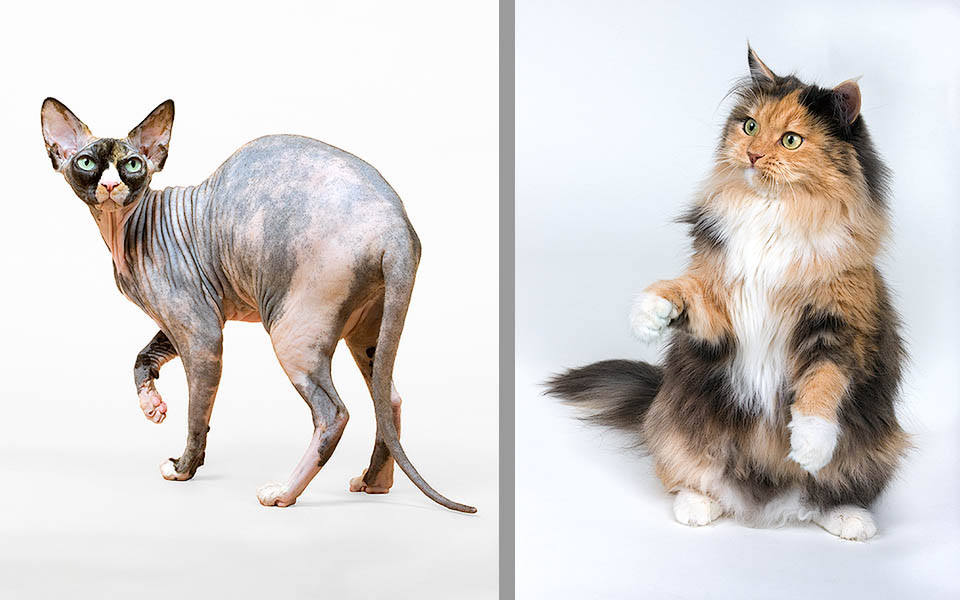
La selezione artificiale ha accentuato nei gatti domestici caratteri opposti, con peli quasi assenti nello Sphynx e particolarmente sviluppati nel Siberiano © Giuseppe Mazza
Muta
In genere i peli della pelliccia vengono periodicamente rinnovati con un processo di muta che solitamente è graduale di modo che la pelle non resta mai nuda.
In alcune specie la perdita del pelo ha inizio da un punto più o meno circoscritto e si estende come un’onda su tutto il corpo, in altre invece la muta procede in modo sparso e irregolare.
Parecchi Mammiferi delle regioni fredde oppure delle alte quote, in autunno cambiano il mantello estivo colorato con uno invernale, bianco e più lungo. Tale fenomeno favorisce la mimetizzazione tra il ghiaccio e la neve e nel contempo riduce la dispersione del calore corporeo.
Nella successiva primavera, una nuova muta ripristina la pelliccia estiva colorata.
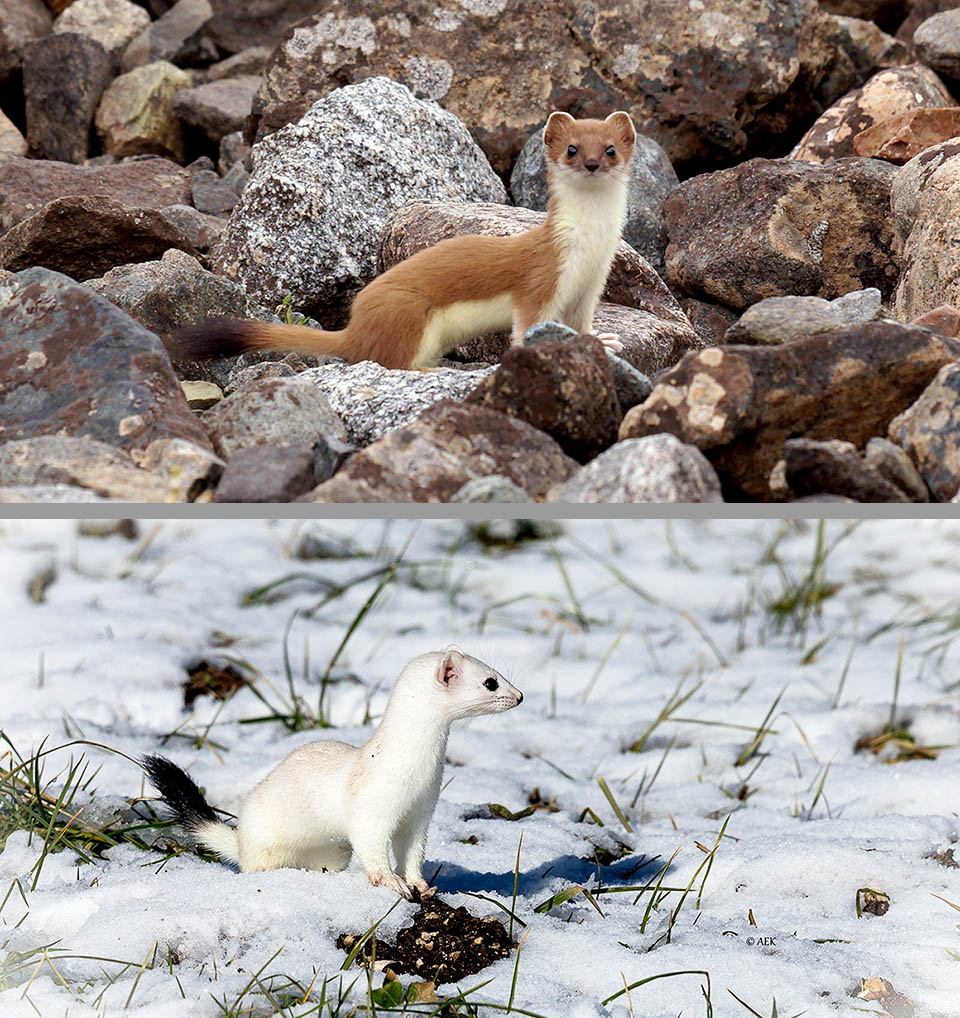
Il pelo dei mammiferi si rinnova continuamente nel tempo con il normale ricambio dei peli e, in molte specie, con mute stagionali che possono modificarne densità e colore per esigenze mimetiche legate all’ambiente. Qui l’ermellino (Mustela erminea), rossiccio d’estate e bianco come la neve d’inverno © Mikhail Protasov (sopra) © AEK (sotto)
Ciascun pelo prende origine da una papilla pilifera, posta alla base di un follicolo pilifero, profonda fossetta tappezzata di epidermide allocata nello spessore del derma. Nel follicolo sbocca una piccola ghiandola sebacea il cui secreto oleosa, detto sebo, provvede a lubrificare il pelo. Su ciascun follicolo si inserisce un piccolo muscolo erettore mediante il quale il pelo può essere drizzato sotto lo stimolo di vari fattori, quali paura, eccitazione, freddo, ecc.
Tipicamente il pelo è costituito di 3 strati di cellule atrofizzate, cuticola, cortex e medulla.
La cuticola (epidermicola), più esterna, è costituita da uno strato di cellule lamellari morte, corneificate ed embricate.
La cortex, o corteccia, strato intermedio che di solito rappresenta la maggior parte del pelo, è formata di residui cellulari ove sono concentrati i vari granuli di pigmenti responsabili essenzialmente del colore del pelo: giallo, rosso, marrone o nero. L’assenza di granuli di pigmento determina l’albinismo.
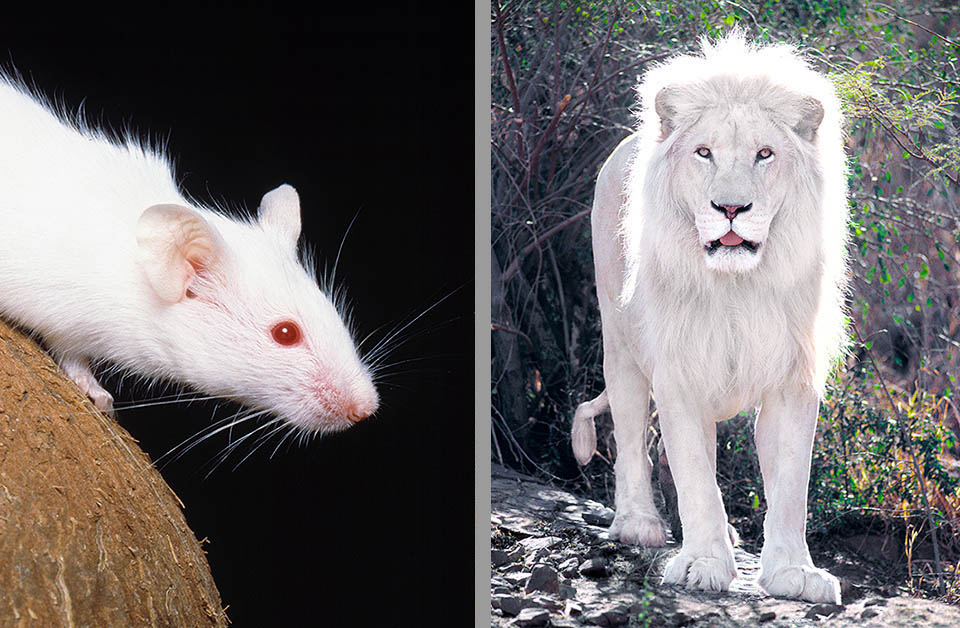
A sinistra un esemplare albino, privo di melanina anche negli occhi. A destra un leone leucista: il mantello è depigmentato ma gli occhi conservano il colore naturale © Giuseppe Mazza
La medulla è la parte centrale del pelo ed è ben sviluppata e con sacche piene d’aria nei peli più grandi, ridotta o completamente assente in quelli più piccoli; l’aumento delle sacche d’aria provoca l’incanutimento del pelo.
Ghiandole cutanee
In relazione alle sue funzioni vitali di protezione, termoregolazione, secrezione, escrezione e sensibilità, il tegumento dei Mammiferi è particolarmente ricco di ghiandole pluricellulari che, dal punto di vista funzionale, vengono distinte in sebacee, sudoripare, odorifere, lacrimali, mammarie. Le ghiandole sebacee, acinose ed olocrine, sono generalmente associate ai follicoli piliferi e producono una secrezione grassa e oleosa (sebo) che mantiene morbidi peli ed epidermide e rappresenta una protezione contro agenti esterni e mantenendoli morbidi. Le ghiandole sudoripare sono indispensabili per la termoregolazione e l’eliminazione di scorie. Possono essere di due tipi principali: apocrino e olocrino.
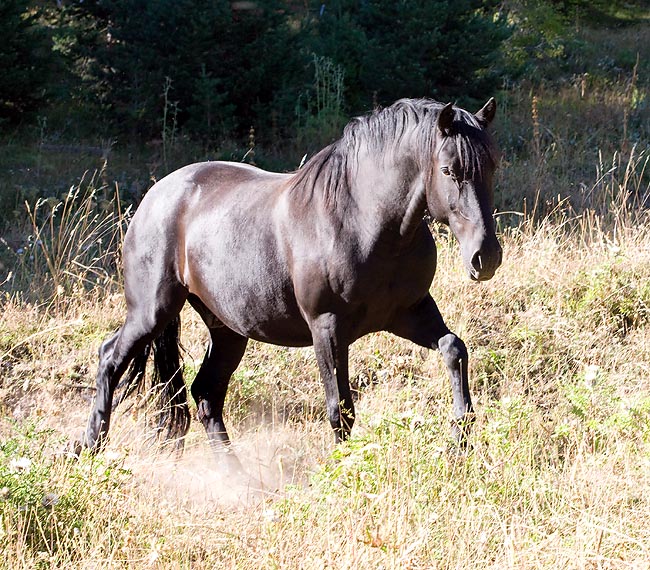
Nei cavalli le ghiandole sudoripare, per la termoregolazione e l’eliminazione di scorie, sono presenti su tutto il corpo © Giuseppe Mazza
Le ghiandole sudoripare di tipo apocrino, presenti in tutti i Mammiferi viventi e ritenute filogeneticamente le più primitive, hanno la parte secernente situata negli strati più profondi dell’epidermide, o addirittura negli strati sottocutanei, e sono dotate di lunghi dotti escretori.
In parecchie specie di Mammiferi, uomo compreso, le ghiandole sudoripare apocrine si sviluppano soltanto col raggiungimento della maturità sessuale e sono circoscritte di preferenza nella regione genitale, attorno ai capezzoli delle mammelle e nelle ascelle.
Queste ghiandole non sembrano essere coinvolte nei processi di termoregolazione corporea, ma il loro secreto costituito da acqua, alcuni sali minerali e composti organici, favorisce il riconoscimento degli individui dei due sessi durante la stagione riproduttiva.
Al contrario, le ghiandole sudoripare olocrine sono presenti sin dalla nascita e nella maggior parte dei Mammiferi che le presentano sono generalmente localizzate nelle regioni prive o povere di peli (naso, cuscinetti carnosi della pianta dei piedi).
In alcuni Mammiferi, quali Cavallo, Scimmie, Uomo ed altri ancora, ghiandole sudoripare olocrine sono ampiamente distribuite in tutto il corpo.
Le ghiandole sudoripare olocrine svolgono un ruolo di fondamentale importanza nei processi di regolazione della temperatura del corpo. Il loro secreto acquoso, particolarmente abbondante allorché la temperatura ambientale è elevata, si propaga sul corpo producendo con la sua evaporazione un’efficace dispersione di calore dalla superficie. I Cetacea e i Pinnipedia mancano di queste ghiandole.
Le ghiandole odorifere, presenti in molti Mammiferi, sono varie per localizzazione; perianali nei Conigli, nei Castori, nei Mustelidi ed in altri, suborbitali e metatarsali nei Cervidi, collocate tra le dita e alla base della coda nei Canidi, fra le dita negli Ovini, ecc. La funzione delle secrezioni delle ghiandole odorifere, che possono essere scarse e delicate, come negli scoiattoli (Sciuridae), oppure abbondanti ed intense, come nelle puzzole (Mustelidae), vengono utilizzate per marcare territori individuali, oppure per facilitare gli accoppiamenti o anche come strumento di difesa.
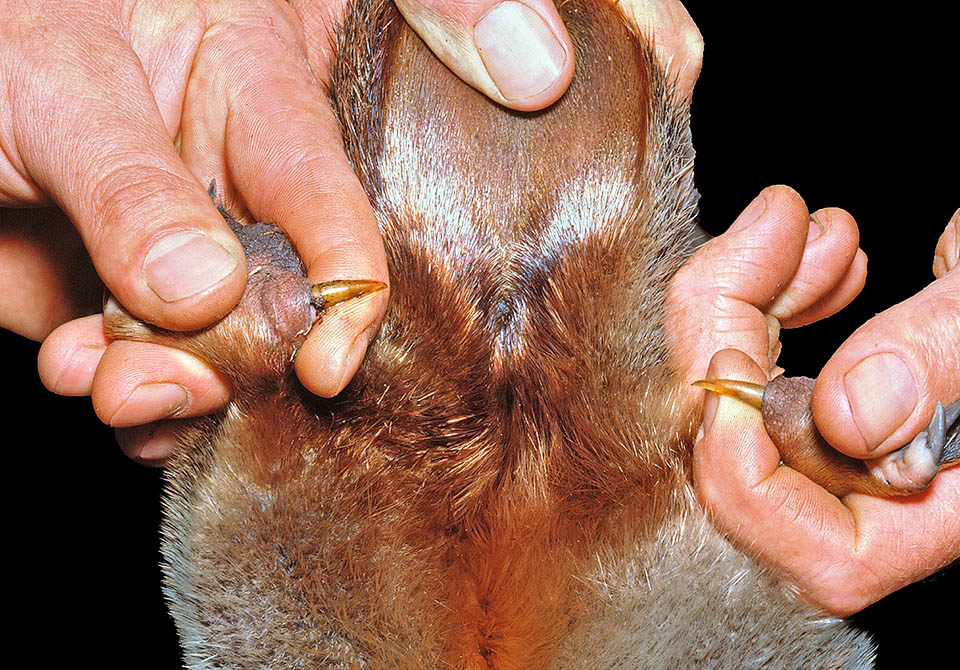
Alcuni mammiferi si difendono col veleno. Nei maschi di Ornithorhynchus anatinus le zampe posteriori recano uno sperone cavo collegato a una ghiandola velenifera © Giuseppe Mazza
Anche se rari, alcuni mammiferi sono provvisti di ghiandole cutanee che secernono una sostanza velenosa o comunque tossica utilizzata per difendersi o per bloccare le prede.
Tra questi, il più pericoloso, anche se non letale, per l’uomo è l’Ornitorinco (Ornithorhynchus anatinus Shaw, 1799), i cui maschi sono armati di uno sperone corneo uncinato posto sul tallone delle zampe posteriori. Ciascun sperone, cavo e mobile, è collegato con una ghiandola alveolare situata nella parte superiore della coscia, il cui secreto velenoso è principalmente attivo durante la stagione riproduttiva.
Ed ancora, tra i Primates, il Loris lento (Nycticebus) è provvisto sulla parte interna dei gomiti di ghiandole che producono un secreto oleoso che viene distribuito sul proprio corpo e su quello dei piccoli mediante il cosiddetto pettine dentale durante la pulizia del mantello. In effetti, Il secreto delle ghiandole di per sé non è velenoso, ma lo diventa con il morso allorché viene mescolato con la saliva del Loris.
Anche i Solenodonti (Solenodon), Mammiferi notturni dei Caraibi simili a Toporagni, iniettano saliva velenosa attraverso i denti.
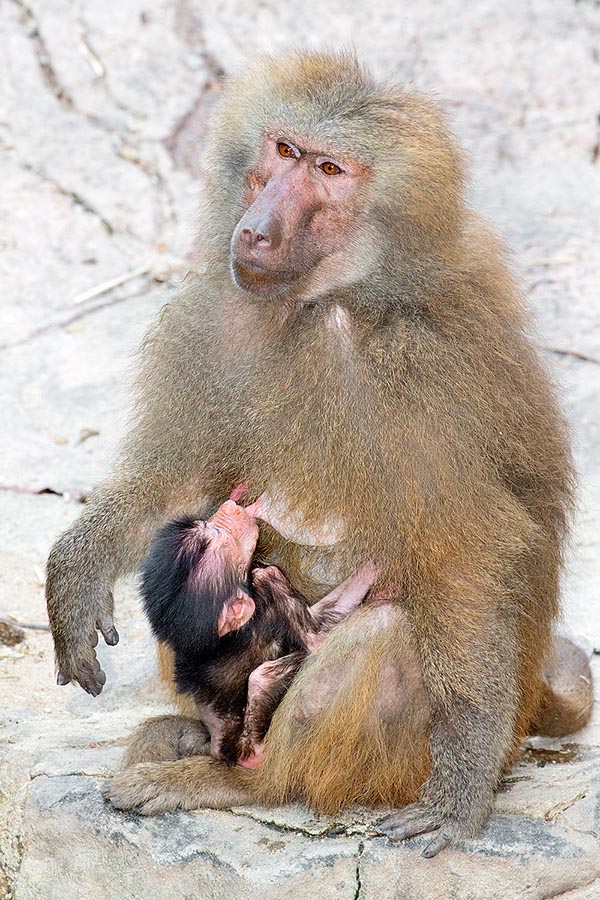
Amadriade (Papio hamadryas) con piccolo in allattamento. Le ghiandole mammarie sono una caratteristica esclusiva dei Mammiferi e derivano da ghiandole sudoripare modificate nel corso dell’evoluzione © G. Mazza
Infine, va ricordato che diverse specie di Toporagni e Talpe, come il Toporagno a coda corta (Blarina brevicauda Say, 1823), producono saliva tossica per paralizzare le prede.
Le ghiandole lacrimali dei Mammiferi sono associate agli occhi e producono un secreto, le lacrime, che inumidisce, deterge e protegge la superficie degli organi della vista.
Le ghiandole mammarie, dette comunemente mammelle, rappresentano una caratteristica esclusiva di tutti i Mammiferi e derivano da ghiandole sudoripare modificate.
Ad eccezione dei Monotremi, che ne sono privi, nei restanti Mammiferi le mammelle sono provviste di capezzoli, strutture cutanee specializzate per l’allattamento. Associate all’apparato riproduttore, le mammelle raggiungono il pieno sviluppo solo nelle femmine, all’epoca della pubertà, e sono regolate dal sistema endocrino sotto lo stimolo dei cambiamenti ormonali associati al parto dei cuccioli.
Nei maschi dei Mammiferi, uomo incluso, le mammelle sono meno sviluppate e, pur presentando capezzoli e tessuto ghiandolare ridotto, non sono funzionali per l’allattamento. La presenza delle ghiandole mammarie anche nei maschi si spiega con il fatto che lo sviluppo embrionale è inizialmente comune nei due sessi; solo in una fase successiva le ghiandole mammarie si differenziano e divengono funzionali solo nelle femmine.
A seconda della specie, il numero delle mammelle dei mammiferi varia da un paio come negli Equidae e nella maggior parte dei Primati, Uomo compreso, fino a diverse paia.
I Gatti hanno 4 paia di mammelle, i cani 5 paia, i Tenrec (Tenrec ecaudatus Schreber, 1778) ne hanno fino a 32.
In genere le mammelle sono disposte lungo la cosiddetta “linea del latte” e possono trovarsi nella zona pettorale, come nei Primates, omo incluso, addominale o inguinale, come avviene in gatti, cani, cavalli e mucche ed altri ancora.
APPARATO CIRCOLATORIO
Nei mammiferi la circolazione del sangue è doppia e completa con il cuore ripartito in due atri e in due ventricoli distinti, separati da un setto. In tal modo, il sangue arterioso proveniente dai polmoni non si mescola con quello venoso, come invece avviene negli anfibi e in parte dei rettili. Tipicamente, l’aorta si origina dal ventricolo sinistro e si piega ad arco verso sinistra. I globuli rossi sono di solito ovali e privi di nucleo; nei Camelidae (cammelli, dromedari, alpaca, lama e vigogna) hanno forma ellittica.
APPARATO RESPIRATORIO
L’apparato respiratorio dei mammiferi si caratterizza per la struttura spugnosa e alveolare dei polmoni che consente una maggiore superficie di scambio di ossigeno (O₂) e anidride carbonica (CO₂).
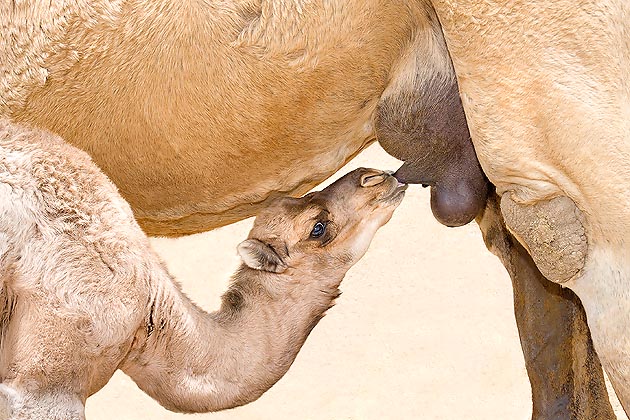
L’allattamento del Camelus dromedarius dura 3-4 mesi. Le mammelle sono situate nella regione inguinale © Giuseppe Mazza
Altra peculiarità esclusiva dei Mammiferi è la presenza di un diaframma muscolare che separa la cavità toracica che contiene cuore e polmoni, da quella addominale nella quale sono contenuti i visceri.
La laringe è provvista delle corde vocali e, tramite la glottide e l’epiglottide, comunica in alto con la faringe.
APPARATO DIGERENTE
La digestione del cibo avviene nel lungo canale alimentare che dalla bocca si estende fino all’apertura anale, differenziandosi in varie porzioni (faringe, esofago, stomaco e intestino). All’apparato digerente sono associate importanti ghiandole, quali ghiandole salivari, pancreas, fegato e ghiandole proprie della parete.
Lo stomaco è semplice nella maggior parte dei Mammiferi.
Diversamente, la maggior parte dei rappresentanti dei Ruminantia, sottordine degli Artiodactyla al quale afferiscono molti grandi erbivori, quali Bufali, Cervi, Antilopi oltre a Buoi, Capre e Pecore, presentano la doppia masticazione del cibo (ruminazione) e lo stomaco è suddiviso in 4 compartimenti: rumine, reticolo, omaso ed abomaso. Va ricordato che nei Ruminanti, il cibo è inizialmente grossolanamente masticato e convogliato nel rumine. Successivamente, dal rumine il cibo viene rigurgitato in bocca in piccole masse (boli alimentari); qui viene masticato completamente e quindi nuovamente deglutito e convogliato nelle restanti cavità dello stomaco.
A questo proposito, va segnalato che i Camelidae, famiglia del sottordine dei Tylopoda (Cammelli, Dromedari, Lama, Alpaca, Vigogne e Guanachi), ritenuti pseudo-ruminanti pur presentando la doppia masticazione del cibo, possiedono uno stomaco tripartito in rumine, reticolo e abomaso. Caratteristica di questi Mammiferi è di possedere nelle pareti del rumine speciali “celle acquifere” per l’accumulo di acqua.
L’intestino segue lo stomaco ed è corto nelle forme che si cibano di altri animali.
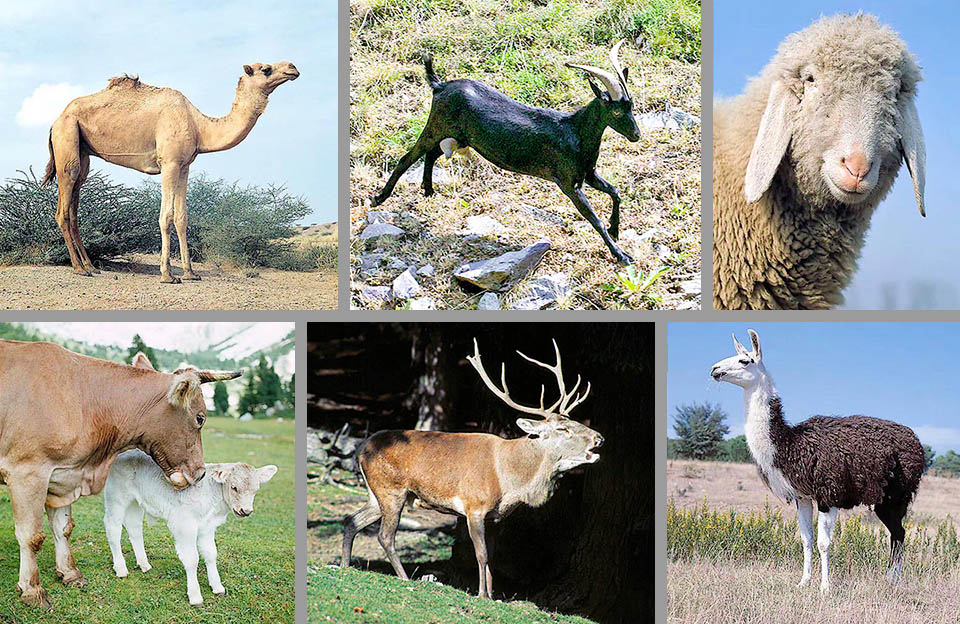
Caprini, ovini, bovini e cervidi sono ruminanti con lo stomaco diviso in quattro sezioni: rumine, reticolo, omaso e abomaso. Nei camelidi l’omaso manca © Giuseppe Mazza
Diversamente, nelle specie che si nutrono di sostanze vegetali l’intestino è considerevolmente lungo, anche oltre 10 volte la lunghezza del corpo. Tale caratteristica anatomica è indispensabile per fermentare, e quindi digerire, la cellulosa, polisaccaride strutturale delle cellule vegetali, difficile da scomporre.
SISTEMA NERVOSO
Nei Mammiferi il sistema nervoso centrale, encefalo, è altamente evoluto e notevolmente più sviluppato e più complesso che nelle altre classi di Vertebrati. Deputato alla ricezione, elaborazione e risposta agli stimoli, l’encefalo si caratterizza per l’elevato sviluppo del telencefalo, con emisferi cerebrali voluminosi, e corteccia cerebrale complessa, frequentemente provvista di circonvoluzioni, solchi e pieghe, che ne aumentano notevolmente la superficie.
Nei Mammiferi Placentati, i due emisferi telencefalici sono collegati medialmente da una tipica commessura o corpo calloso. Relativamente di piccole dimensioni in alcune forme, il telencefalo è di solito ben sviluppato e ricopre le restanti parti dell’encefalo.
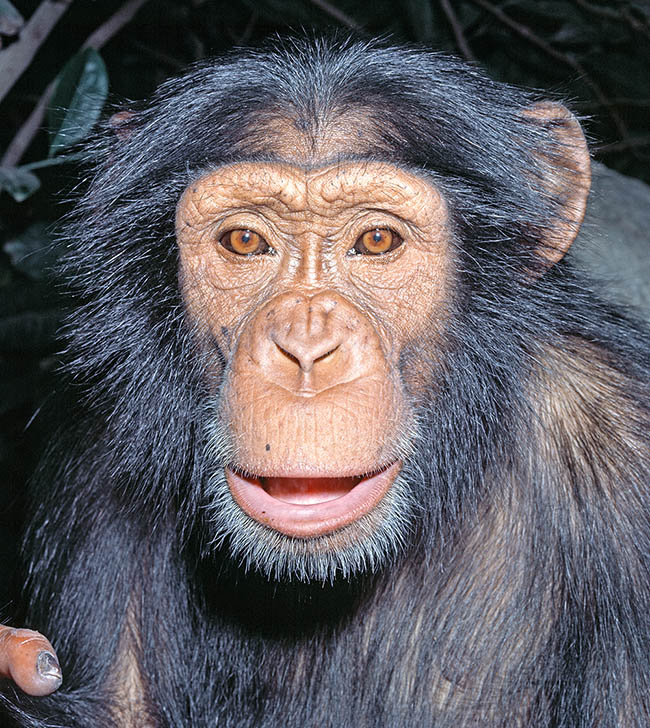
Nei Mammiferi l’encefalo raggiunge il massimo sviluppo tra i Vertebrati. Nelle scimmie antropomorfe, e soprattutto nell’Uomo, la neocorteccia domina le funzioni superiori: memoria, apprendimento, linguaggio e analisi sensoriale © Giuseppe Mazza
Lo sviluppo del telencefalo diviene massimo nei Primates. Particolarmente sviluppata è la neocorteccia, o isocorteccia che rappresenta la parte più recente ed evoluta del cervello dei Mammiferi, caratteristica distintiva rispetto ai restanti vertebrati.
Variamente estesa, la neocorteccia cerebrale raggiunge il massimo del suo sviluppo nei Primates e in maggior misura nell’Uomo ove costituisce circa il 90% della corteccia, ed è responsabile di funzioni cognitive superiori come memoria, apprendimento, linguaggio, analisi sensoriale.
La funzionalità del sistema nervoso viene integrata dall’azione di un sistema ghiandolare endocrino particolarmente attivo.
SCHELETRO
Lo scheletro dei Mammiferi è composto per la massima parte da tessuto osseo.
Anche se limitato, tessuto cartilagineo permane negli adulti in alcune parti per garantire flessibilità, ridurre l’attrito articolare e fornire supporto strutturale, come nelle superfici articolari, nelle costole, naso, laringe, trachea, bronchi.
Certi tendini includono piccole ossificazioni dette ossa sesamoidi, la più grossa delle quali è la rotula, o patella, del ginocchio.
Il cranio dei Mammiferi si caratterizza per un’elevata specializzazione, con un neurocranio ampio per accogliere un encefalo voluminoso.
Nella colonna vertebrale si distinguono le regioni tipiche dei Tetrapodi: cervicale, toracica, lombare, sacrale caudale.
Le vertebre cervicali nella quasi totalità dei Mammiferi sono 7 e il loro numero è indipendente dalla lunghezza del collo. Questa caratteristica anatomica riguarda anche specie con colli lunghissimi, quali Giraffe, o cortissimi, come Balene.
La regione toracica è formata da 13 vertebre su cui si articolano le coste.
Le vertebre lombari sono 7, quelle sacrali sono 3 e sono fuse (osso sacro) per l’attacco del cingolo pelvico.
Le caudali, fino a 20 in diverse specie di Mammiferi, nelle Scimmie antropomorfe e nell’Uomo si riducono ad un piccolo osso (coccige) formato da vertebre rudimentali.
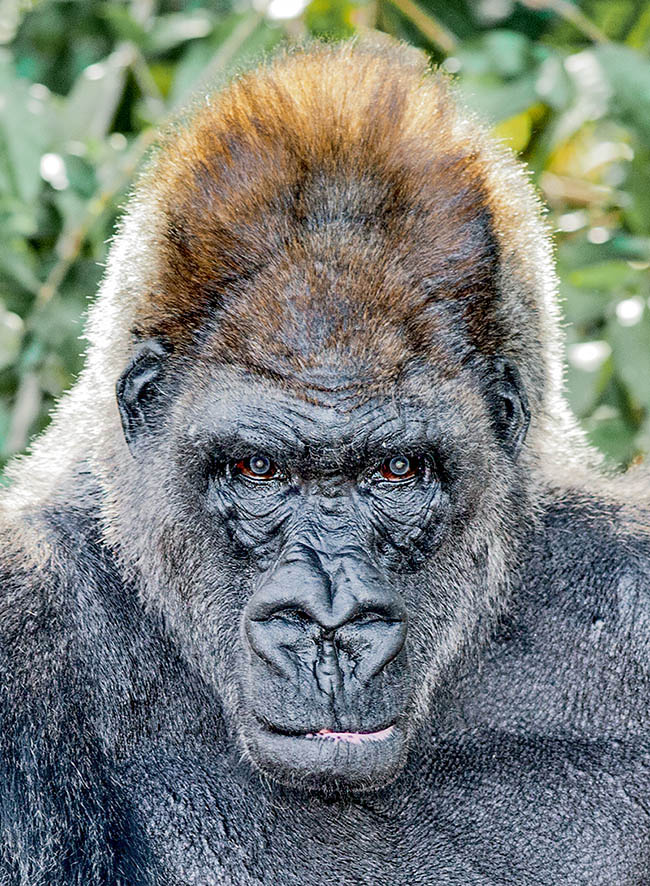
Gorilla gorilla. Il grande sviluppo cerebrale si riflette anche in un cranio ampio e robusto © Giuseppe Mazza
I corpi vertebrali sono generalmente anfipiani o aceli, ma talora più o meno opistoceli (Ungulati), e separati da dischi intervertebrali che consentono i movimenti di flessione di tutta la colonna.
Lo sterno, sottile osso medioventrale tipico della classe, e le 13 paia di coste o costole, formano la gabbia toracica, flessibile impalcatura che, oltre a proteggere gli organi vitali all’interno, effettua i movimenti respiratori.
Il cingolo scapolare o pettorale è caratterizzato dalla presenza di una robusta spina nella scapola.
Il cingolo pelvico, rigidamente connesso al sacro, comprende su ciascun lato ilio, ischio e pube.
Ciascun arto anteriore è formato da omero, radio e ulna distinti, 7 ossa carpali, 5 metacarpali, di cui quello più interno è breve, e le falangi delle dita.
Le ossa che formano ciascuno degli arti posteriori sono femore, tibia e fibula distinte, 7 ossa tarsali della caviglia, 4 lunghe ossa metatarsali (e un rudimento del più interno), e le falangi delle dita.
APPARATO RIPRODUTTORE e RIPRODUZIONE
I Mammiferi sono animali a sessi separati, con un dimorfismo sessuale che in parecchi casi è vistosamente accentuato.
In genere, rispetto alle femmine, i maschi presentano caratteri esteriori molto vistosi, come criniere e barbe, corna più grandi, mantello più appariscente, voce con tono più basso e profondo, ecc.
In molti Mammiferi, i due sessi presentano le stesse dimensioni, però in alcune specie i maschi sono più grandi delle femmine, in altre invece avviene l’opposto.
Esempi notevoli di differenze di mole tra i due sessi si riscontrano nella Foca elefante settentrionale (Mirounga angustirostris ), in cui il maschio è oltre 3 volte più pesante della femmina, e nel Pipistrello dal naso a tubo peninsulare (Murina), dove invece è la femmina ad essere 1,4 volte più grande del maschio.
Le femmine dei Marsupialia si differenziano dai maschi per la presenza della tasca marsupiale o marsupio.
Nella stragrande maggioranza delle specie, i Mammiferi sono animali vivipari, in quanto le femmine partoriscono cuccioli il cui sviluppo embrionale si compie, completamente (Eutheria) o parzialmente (Marsupialia), all’interno del corpo materno.
Diversamente dai restanti Mammiferi, i Prototheria sono ovipari e le femmine depongono uova fecondate la cui crescita embrionale invece avviene al di fuori dell’organismo materno.
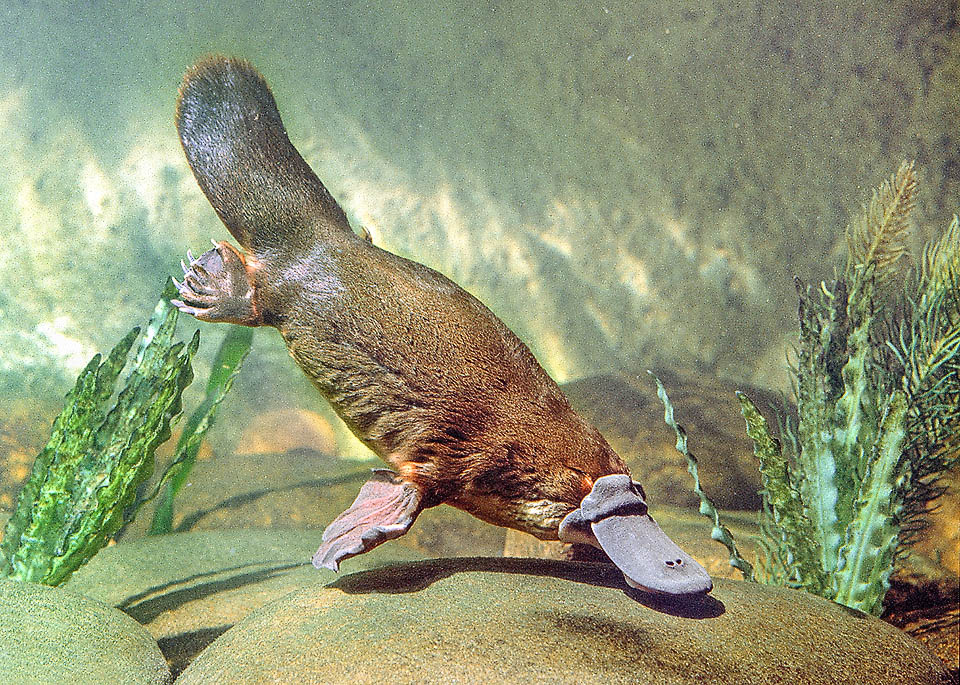
I Mammiferi sono per lo più vivipari con sviluppo embrionale nel corpo materno, ma l’Ornitorinco, pur allattando, depone nel suolo 2 uova alla volta con guscio calcareo © Giuseppe Mazza
I Prototeri, inclusi tra i Mammiferi in quanto provvisti di ghiandole mammarie con cui allattano i piccoli, sono rappresentati dall’unico ordine Monotremata al quale vengono ascritte appena 5 specie viventi: l’Ornitorinco o Platipo (Ornithorhynchus anatinus Shaw, 1799) e le Echidne o Formichieri spinosi (Tachyglossus).
Le gonadi maschili, comunemente dette testicoli, sono pari e deputate alla produzione di spermatozoi e di ormoni sessuali, principalmente testosterone.
In tutti i Mammiferi la sede originaria dei testicoli è all’interno della cavità addominale ma nella maggior parte specie diventano esterni a seguito di una migrazione all’interno dello scroto (discesa testicolare), sede definitiva.
Lo scroto è una sacca cutanea posta alla base del pene che ne garantisce una temperatura inferiore a quella corporea, necessaria per lo svolgimento dello sviluppo degli spermatozoi (spermatogenesi).
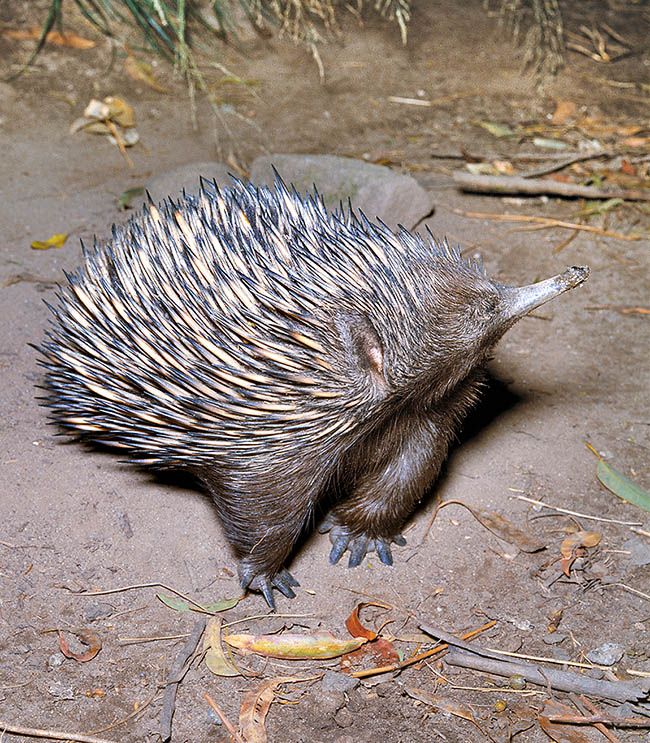
Fra i Mammiferi Prototeri l’Echidna (Tachyglossus aculeatus) depone in genere 1 uovo, talora 2, in una tasca ventrale © Giuseppe Mazza
Nei Mammiferi, i testicoli si portano nello scroto in tempi diversi a seconda della specie, in genere tra la fase fetale avanzata e il primo periodo di vita post-natale.
Singolare è il caso dei Rodentia nei quali i testicoli si accrescono e si portano nello scroto soltanto nel periodo riproduttivo; quindi si riducono e si riportano nell’addome.
L’organo copulatore, pene, è erettile e, più o meno libero nella maggior parte delle specie.
I maschi di parecchi Mammiferi possiedono un pene retrattile, che allorquando è in riposo è alloggiato all’interno di una guaina o tasca prepuziale.
Diversamente dagli altri Mammiferi, i Monotremata hanno i testicoli interni e il pene è contenuto all’interno della cloaca e viene estroflesso soltanto per la copula.
Questa caratteristica anatomica si è affermata in quanto presenta il vantaggio di proteggere il pene dagli agenti esterni.
L’organo copulatore, attraversato longitudinalmente dall’uretere, in molti casi è sorretto da un particolare osso penieno (baculum o os penis), la cui forma varia a seconda della specie.
Tra le ghiandole annesse alle vie genitali maschili, la prostata è sempre presente.
L’apparato riproduttore femminile, oltre agli ovari, include le vie genitali, rappresentate da un paio di ovidutti, dall’utero e dalla vagina, in cui l’uovo può venir fecondato dallo spermatozoo e svilupparsi in embrione.
Nelle forme più primitive le vie genitali femminili subiscono una graduale fusione in strutture impari mediane; questa riguarda più primitivamente la vagina, quindi l’utero con diversi gradi di fusione (utero bipartito, bicorne, fino all’utero semplice).
La vagina, doppia nei Monotremata e nei Marsupialia più primitivi, presenta un organo erettile (clitoride), spesso dotato di un piccolo osso clitorideo.
In relazione alla viviparità, le femmine di quasi tutti i rappresentanti dei Mammiferi producono uova piccolissime e povere di vitello (oligolecitiche). Ciò è da porre in relazione al fatto che l’embrione si sviluppa all’interno del corpo materno attraverso le formazioni placentari.
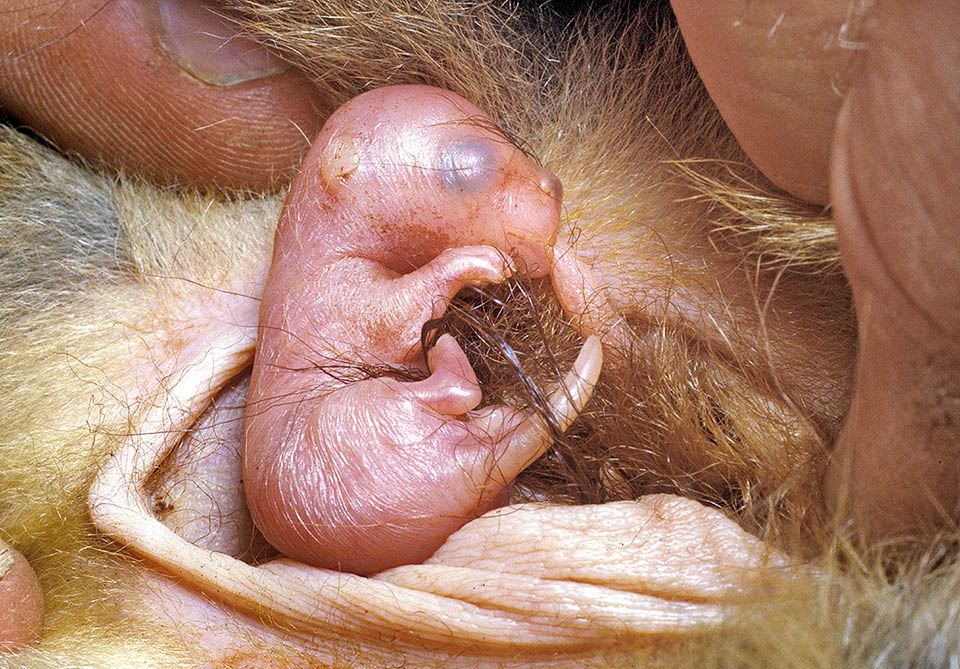
Il passaggio dall’uovo che si sviluppa in una tasca ventrale al marsupio è davvero breve: ecco, attaccato a un capezzolo, un embrione di canguro © Giuseppe Mazza
Diversamente, i Monotremata, privi di formazioni placentari, producono uova con abbondante vitello (telolecitiche), simili a quelle dei Rettili e di diametro compreso tra 1,3 e 2,4 cm. In questo caso tale caratteristica biologica trova la logica spiegazione nella oviparità di questi Mammiferi primitivi.
La femmina dell’Ornitorinco (Ornithorrhynchus anatinus Shaw, 1799) depone in cavità del suolo 2 uova per volta provviste di guscio calcareo.
A sua volta, la femmina dell’Echidna (Tachyglossus aculeatus Shaw, 1792) in genere custodisce un solo uovo, raramente 2, all’interno di una tasca ventrale.
Annessi extra-embrionali
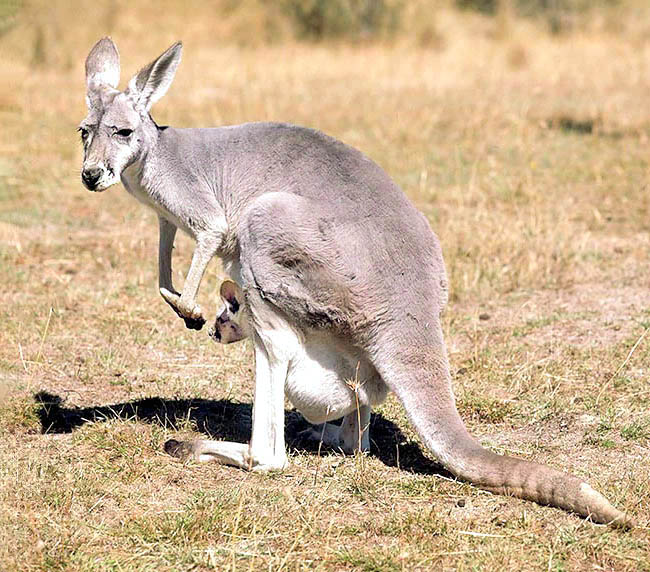
Quando cresce, il piccolo del Canguro rosso (Macropus rufus) entra ed esce dal marsupio, dove trova cibo e rifugio © Giuseppe Mazza
Come avviene nei Rettili (Reptilia) e negli Uccelli (Aves), anche nelle femmine dei Mammiferi si formano annessi extra-embrionali fondamentali per la nutrizione, respirazione e protezione del feto durante la gravidanza.
Nello specifico, l’allantoide è un annesso extra-embrionale che agisce come organo respiratorio ed escretorio e partecipa alla formazione del cordone ombelicale, dei vasi sanguigni e della vescica urinaria.
L’amnios, detto anche sacco amniotico, è una membrana che avvolge l’embrione e lo mantiene in un ambiente liquido amniotico svolgendo così un ruolo fondamentale per l’integrità della gravidanza.
La sierosa esterna o corion, è un annesso extra-embrionale costituito da una membrana più esterna che ricopre l’embrione, esercitando un fondamentale ruolo protettivo e nutritivo.
Nei Metateri (Marsupialia) avviene un rilevante sviluppo del sacco vitellino che si attacca al corion sul quale si sviluppano però pochi villi primari che talora si collegano con la mucosa uterina e danno origine a un’onfaloplacenta o placenta coriovitellina. Questa struttura risulta poco efficace e assicura una nutrizione dell’embrione molto inadeguata e funzionante solo per poco tempo.
Per tale motivo nei Marsupiali il parto è precoce e i neonati, piccoli e molto immaturi, sono obbligati a migrare molto precocemente all’interno del marsupio ove completano il proprio sviluppo. Diversamente accade negli Euteri o Mammiferi superiori, indicati anche con il nome di Placentati, ove il feto si sviluppa interamente all’interno del corpo materno, grazie alla formazione di una placenta allantoidea.
La placenta allantoidea si forma a seguito del fatto che il corion si fissa alla parete dell’utero tramite numerosissimi villi e si unisce intimamente con l’allantoide, a sua volta riccamente vascolarizzata, anziché con il sacco vitellino come avviene nei Marsupialia.
L’efficienza della placenta allantoidea è tale da consentire una lunga permanenza dell’embrione nell’utero e quindi il suo sviluppo avanzato.
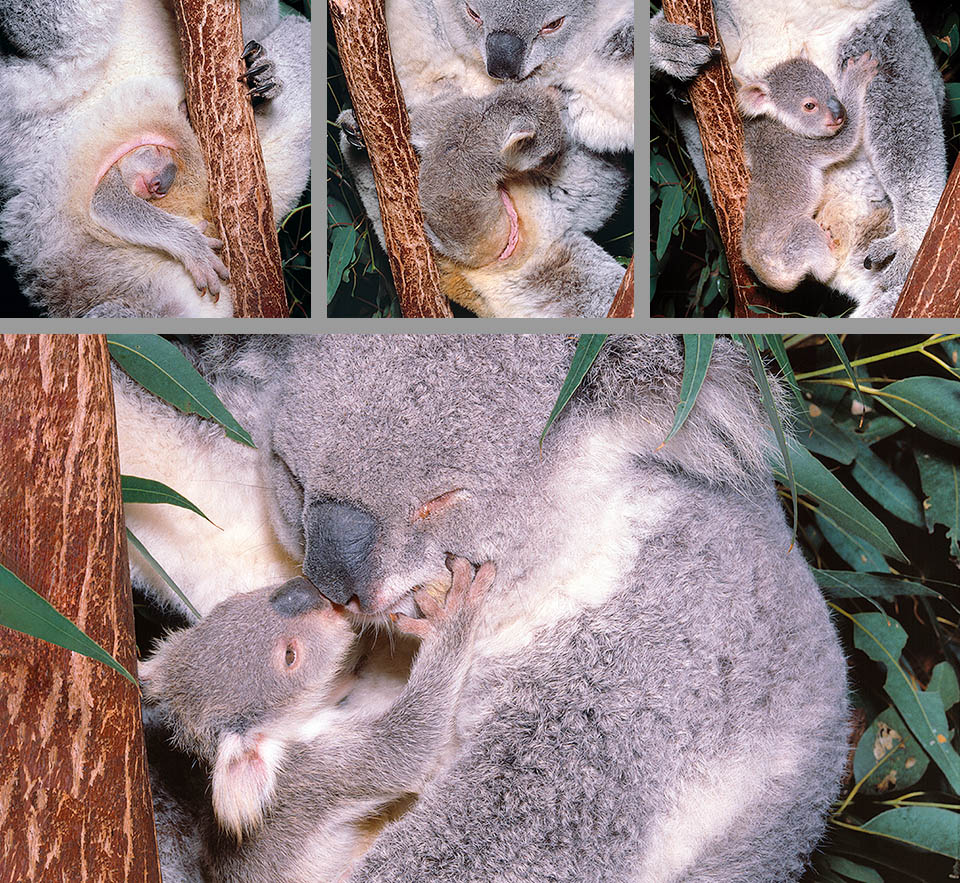
L’invenzione del marsupio ha portato molti mammiferi marsupiali australiani a ricreare forme e caratteristiche dei mammiferi placentati, adattandosi a necessità ambientali simili. Qui un piccolo di Koala (Phascolarctos cinereus) si sveglia ed emerge dal marsupio cercando subito il contatto affettuoso e protettivo con la madre © Giuseppe Mazza
Nei Mammiferi, il numero dei cuccioli nati in ogni gravidanza è di solito inversamente proporzionale alle dimensioni dell’animale. In genere, le specie di grande mole partoriscono un figlio l’anno, mentre quelli di piccole dimensioni sono più prolifiche e si caratterizzano per un periodo di gestazione più breve e con diverse gravidanze annuali.
Nella maggior parte della classe, l’attività riproduttiva è ciclica e controllata da ormoni. Le femmine manifestano fasi di attività sessuale (estro) che in genere avvengono in primavera o in inverno, in rapporto con la maturazione dei follicoli ovarici, alternati a periodi di inattività (anestro).
Diverse specie di Mammiferi si riproducono una sola volta all’anno, alcune più di una.
In alcuni rappresentanti della classe (Roditori, Carnivori, ecc.) i neonati sono deboli, spesso hanno le palpebre chiuse e mancano anche di pelame (prole inetta).
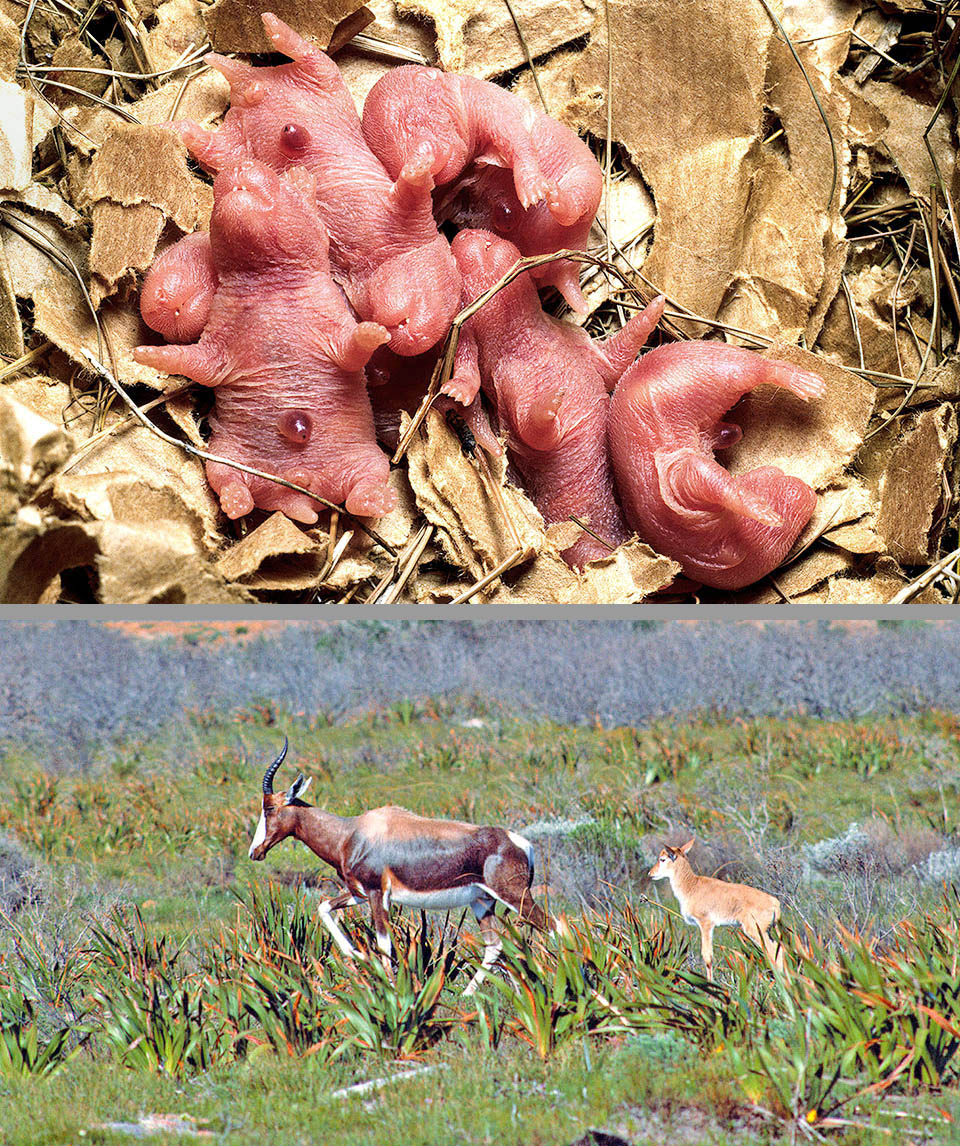
Prole inetta e prole atta. Alcuni mammiferi nascono nudi e ciechi, come questi criceti; altri col pelo e occhi aperti, in grado di seguire già i genitori, come Damaliscus dorcas © Giuseppe Mazza
In altri Mammiferi (Artiodattili, Perissodattili, ecc.) invece, i cuccioli nascono con il corpo già ricoperto di peli, hanno gli occhi aperti e sono in grado di camminare non molto tempo dopo la nascita (prole precoce o atta).
Dopo la nascita i piccoli dei Mammiferi sono oggetto di particolari cure per un periodo di tempo molto vario (cure parentali).
La cura della prole è affidata soltanto alla madre o ad entrambi i genitori a cui possono associarsi anche componenti della stessa specie. Di solito le cure parentali sono semplici nelle forme meno evolute e più prolifiche, mentre si presentano molto specializzate in quelle a lunga gestazione e con numero ridotto di figli.
Il primo e più importante momento delle cure parentali è certamente quello dell’allattamento. In questo periodo, ed anche dopo, i cuccioli, oltre ad essere nutriti, ricevono da parte della madre informazioni di primaria importanza per la loro sopravvivenza.
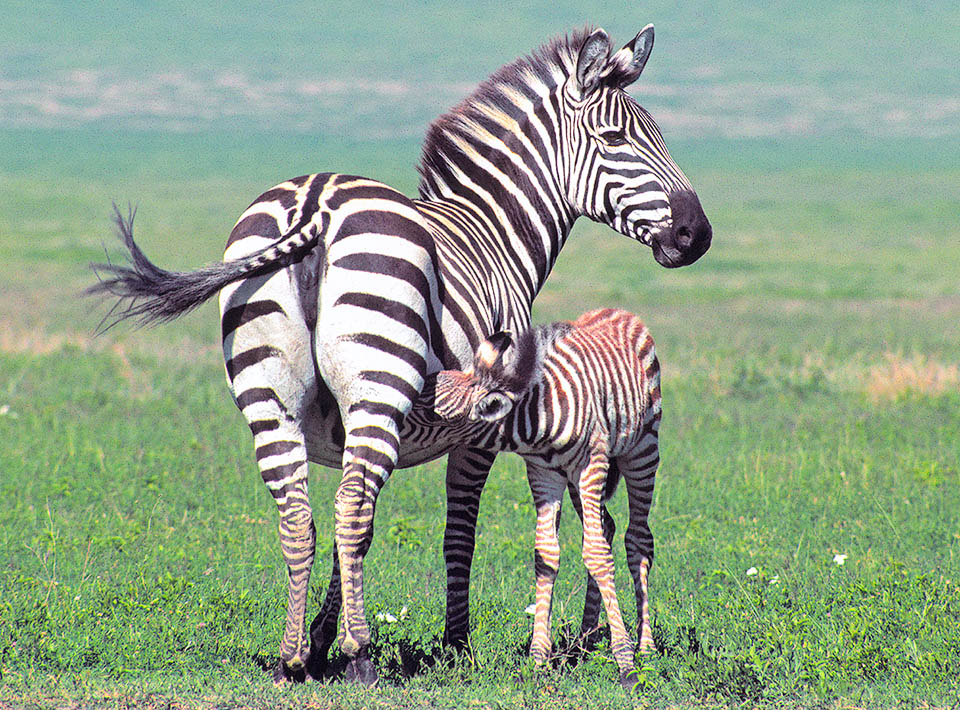
La cura della prole è affidata anzitutto alla madre che allatta. I piccoli sono protetti dal padre e dai conspecifici, che trasmettono loro esperienze utili alla sopravvivenza © Giuseppe Mazza
La durata dell’allattamento è molto varia a seconda del gruppo e generalmente dura fin quando i piccoli sviluppano una efficiente dentatura, diventando quindi in grado di nutrirsi autonomamente.
In molti Mammiferi sono state osservate cure di tipo protettivo riguardanti la difesa dai predatori, scelta dei rifugi, ecc., e cure di tipo educativo, idonee a trasmettere ai figli esperienze utili alla loro sopravvivenza.
DISTRIBUZIONE E COMPORTAMENTO
Gli attuali Mammiferi si rinvengono praticamente in quasi tutti gli habitat disponibili a tutte le latitudini del nostro pianeta. La maggior parte delle specie di Mammiferi vive sulle terre emerse, ma non sono poche quelle che sono adattate alla vita acquatica (Cetacea, Pinnipedia, Sirenia, ecc.). Alcune forme di Mammiferi sono capaci di compiere un vero e proprio volo attivo come i Pipistrelli (Chiroptera).
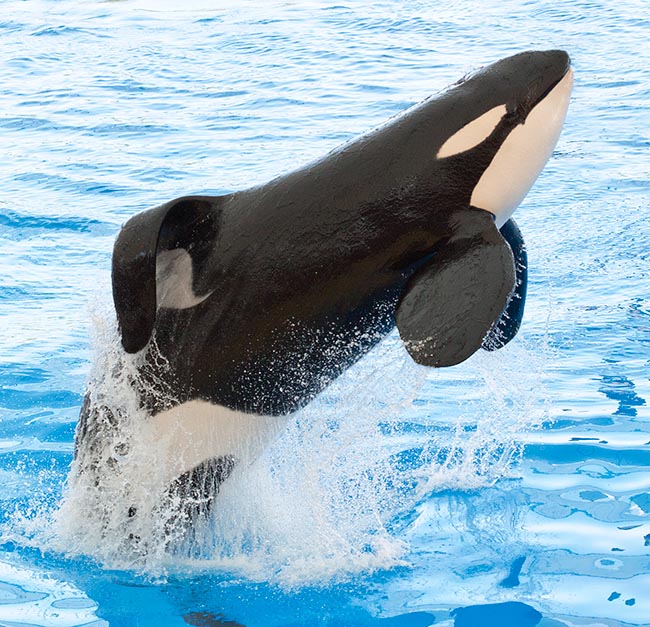
I mammiferi hanno colonizzato tutto il pianeta. La maggior parte vive sulle terre emerse, ma alcuni, come questo Orcinus orca, si sono adattati alla vita acquatica diventando grandi predatori marini in tutto il mondo © G. Mazza
Diversi Mammiferi riescono a realizzare un volo planato, come il Petauro maggiore (Petauroides volans Kerr, 1792) tra i Marsupialia, gli Scoiattoli volanti (Pteromyini Brandt,1855) tra i Rodentia e i Lemuri o Colughi volanti tra i Dermoptera.
Moltissimi Mammiferi vivono sul suolo, molti sono arboricoli, parecchi sono ipogei.
ALIMENTAZIONE
L’alimentazione dei Mammiferi è estremamente varia.
Molte forme, come gli Ungulati e la maggior parte dei Rodentia si nutrono esclusivamente o prevalentemente di sostanze vegetali, come erbe, foglie, ramoscelli, corteccia, semi, polline, nettare e frutti.
Numerose specie di Mammiferi sono predatori di altri animali.
I Felidae e i Mustelidae sono carnivori, i Pinnipedia e i Cetacea Odontoceti si nutrono essenzialmente di pesci; i Talpidae, i Soricidae e parecchi piccoli Pipistrelli sono prevalentemente o esclusivamente insettivori.
Alcuni Mammiferi hanno un regime alimentare misto e si alimentano sia di sostanze animali che vegetali.
Le specie con regime alimentare specializzato sono molto rare. Alcuni Mammiferi si nutrono di plancton (Cetacea Misticeti), altre di sangue, come i Pipistrelli vampiro ( Desmodus Wied-Neuwied, 1826) tra i Chiroptera. Pochissime specie sono monofaghe, come il Koala (Phascolarctos cinereus Goldfuss, 1817), marsupiale che si nutre soltanto di foglie di eucalipto.
In genere le specie di Mammiferi ad ampio spettro alimentare (euritrofi) riescono a vivere stabilmente nello stesso territorio perché capaci di nutrirsi di vario alimento nelle diverse stagioni.
Diversamente, le forme a regime alimentare più strettamente definito (stenofagi) sono costrette a supplire alla carenza stagionale del loro nutrimento abituale compiendo migrazioni, oppure entrando in estivazione o in ibernazione, riducendo al minimo le funzioni vitali.
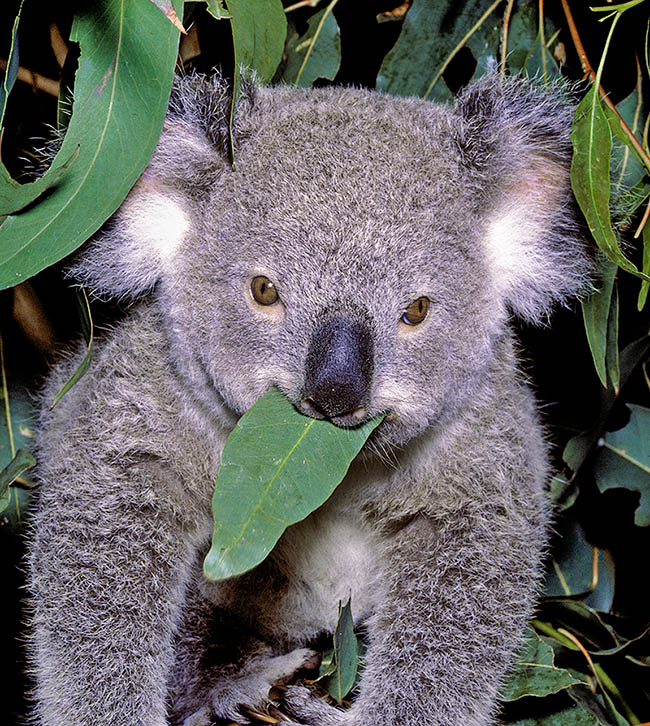
Pochissimi mammiferi sono monofaghi, come il Koala (Phascolarctos cinereus), che si nutre solo di foglie d’eucalipto © Giuseppe Mazza
Diverse specie di Foche (Pinnipedia), Balene (Cetacea Misticeti), Renne (Rangifer tarandus Linneo, 1758) e di Pipistrelli (Chirotera), compiono migrazioni latitudinali, talora di grande portata.
Diversamente accade in alcune regioni temperate ove Cervidae, Bovidae e altri Mammiferi compiono migrazioni altitudinali, stabilendosi in alta montagna nei mesi estivi e portandosi nelle valli vicine nel corso dell’inverno.
Migrazioni locali di portata relativamente ridotta, ai osservano in molti Rodentia e Lagomorfi e in alcuni Chirotteri.
Altri Mammiferi invece, durante le stagioni in cui il cibo scarseggia e le condizioni ambientali sono avverse sono in grado di passare a vita inattiva, divenendo momentaneamente eterotermi, e sopravvivono utilizzando sostanze di riserva, precedentemente accumulate nei tessuti. Se tale periodo di inattività accade nel corso dei mesi estivi, il fenomeno è detto estivazione.
Le forme estivanti, la maggior parte delle quali si ciba di vegetali, si ritirano solitamente in tane sotterranee ove dormono. In questo modo durante l’estivazione vengono rallentati i processi metabolici con conseguente risparmio dell’energia immagazzinata.
Il fenomeno dell’estivazione è limitato a poche specie che vivono in ambienti con clima molto caldo e secco, quali Rodentia, Insettivori e Marsupialia.
A differenza del letargo, l’estivazione consente di superare lunghi periodi di ostilità ambientale.
Diversamente, l’ibernazione o letargo, oppure torpore si verifica nel corso dei mesi freddi.
Gli animali ibernanti diventano ancora più marcatamente eterotermi, rallentando notevolmente la frequenza degli atti respiratosi, il ritmo dei battiti del cuore, ecc.
Parecchi Carnivori, come gli Orsi, dormono per quasi tutto il periodo invernale ma il loro tasso metabolico, e di conseguenza la loro temperatura corporea non si abbassano drasticamente, per cui il loro è da ritenere un sonno invernale, piuttosto che un vero e proprio letargo.
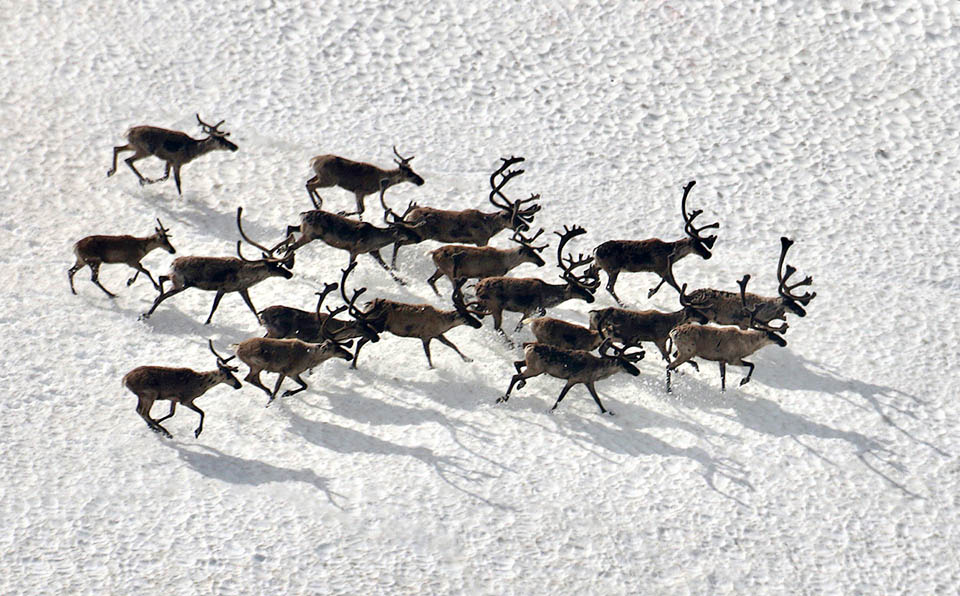
Per nutrirsi le renne (Rangifer tarandus) compiono lunghe migrazioni invernali alla ricerca di cibo nei boschi o sotto la neve © Jeffrey H. Skevington
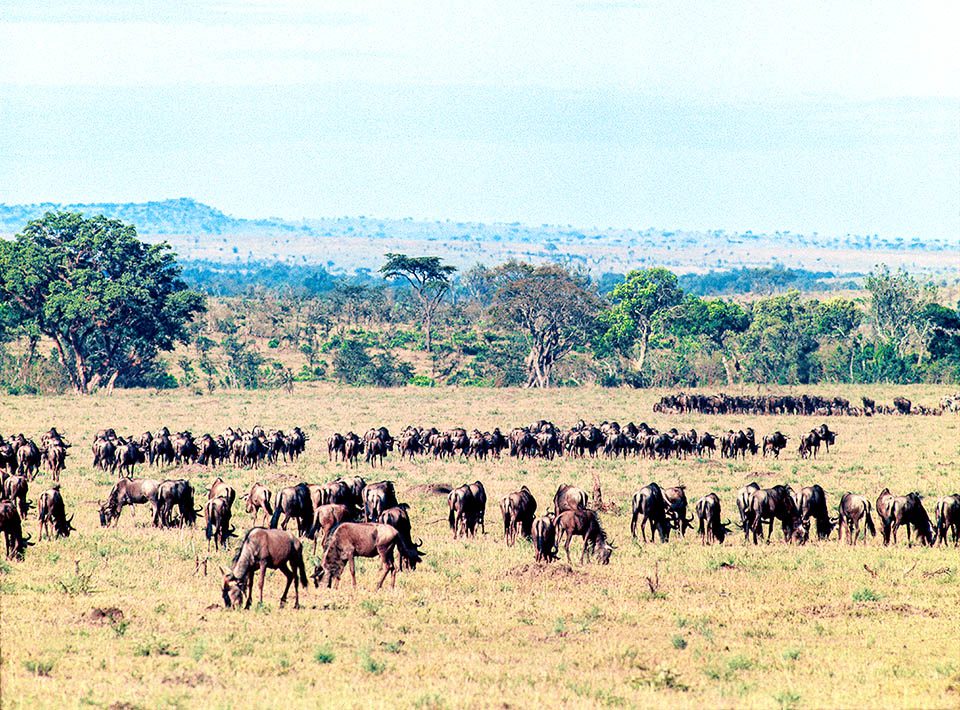
Analogamente gli Gnu (Connochaetes taurinus) percorrono circa 800 km all’anno tra Tanzania e Kenya per sfuggire all’aridità © Giuseppe Mazza
COMUNICAZIONE
I Mammiferi comunicano tra loro tramite segnali vari, olfattivi, vocali, visivi, acustici, tattili ecc. L’attività di comunicazione è maggiormente sviluppata in quelle specie che vivono in gruppi sociali.
Svariate attività, in maniera particolare quelle legate alla riproduzione e alla coesione del gruppo, sono spesso associate a segnali di natura chimica svolti da feromoni costituiti dal secreto delle menzionate ghiandole odorifere.
È attraverso i feromoni che in molte specie avviene il riconoscimento della propria prole o dei componenti del proprio gruppo familiare.
Molti Mammiferi utilizzano la mimica facciale e corporea, come la posizione del corpo, delle orecchie e della coda, l’esposizione di parti colorate, come messaggi visivi per esprimere paura, eccitazione, irritazione, ecc.
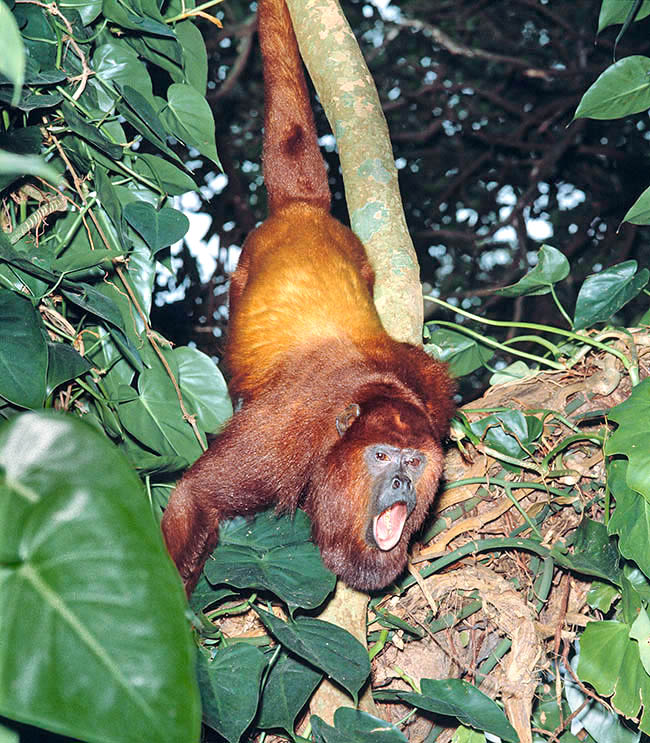
Una scimmia urlatrice (Alouatta seniculus). I mammiferi comunicano soprattutto con segnali vocali, olfattivi e visivi © Giuseppe Mazza
Parecchie specie utilizzano la propria voce per trasmettere informazioni con diversi significati: mantenere la coesione all’interno di un branco, favorire l’incontro di maschi e femmine per l’accoppiamento, localizzare i genitori o la prole, ed ancora per segnalare un pericolo, intimidire eventuali nemici.
I Pipistrelli (Chiroptera) emettono brevi treni di ultrasuoni (50 kHz) che, riflessi dagli oggetti vicini, li guidano anche nel volo e nella individuazione della preda; lo stesso accade in alcuni Toporagni (Soricidae).
Alcuni grossi Cetacea Elefanti, Rinoceronti, Ippopotami, Giraffe, Alligatori ed altri producono infrasuoni, con bassa frequenza che si aggira sui 20 Hz, che vengono rilevati anche a chilometri di distanza.
Il linguaggio, in genere costituito da segnali stereotipati, è più vario nei Primati nei quali diviene articolato nell’Uomo.
Altri metodi di comunicazione alquanto usati sono i rumori variamente prodotti, come lo sbattere della coda contro la superficie dell’acqua del Castoro (Castor Linnaeus, 1758)
Parecchi Mammiferi, come i cani della prateria (Cynomys Rafinesque, 1817), utilizzano segnali tattili del modello del bacio per riconoscere i componenti del proprio branco.
Poche specie di Mammiferi conducono vita nomade; solitamente ciascun individuo occupa uno spazio definito, area familiare, all’interno del quale esso si muove svolgendovi tutte le proprie attività (alimentari, di riposo, riproduttive, di svago, ecc.).
L’ampiezza dello spazio dell’area familiare occupata dai Mammiferi varia a seconda della specie ed è influenzata da vari fattori, quali le dimensioni dell’animale, la sua mobilità, le sue abitudini alimentari, il sesso, l’età, la stagione, la densità di popolazione. L’area familiare è di pochi metri quadrati in alcuni piccoli Roditori ed Insettivori. Diversamente, nei grandi Carnivori e nei Cetacea l’area familiare si estende per parecchi chilometri quadrati.
Molti Mammiferi hanno sviluppato il senso della territorialità (territorialismo) e difendono attivamente dall’intrusione di altri individui il proprio rifugio e il territorio circostante.
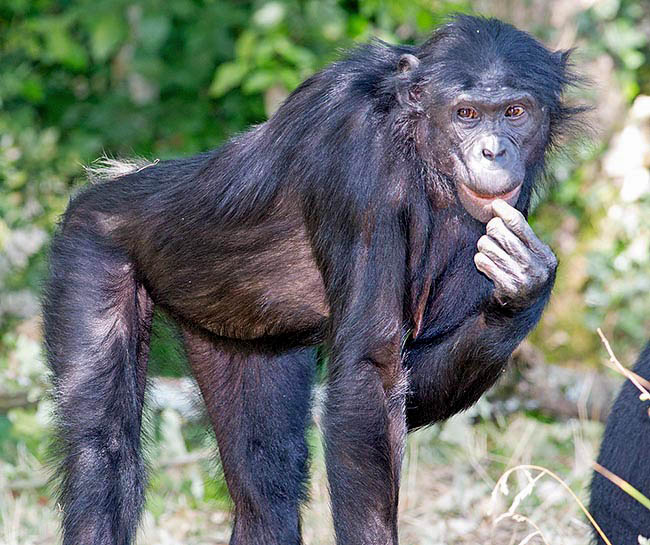
Sguardo interessato a un maschio di una femmina di Bonobo (Pan paniscus) © Giuseppe Mazza
In alcune specie il comportamento di difesa si manifesta unicamente nel corso del periodo riproduttivo e della cura della prole, in altre invece è permanente.
Molti Mammiferi utilizzano ripari per il riposo, accudire alla propria prole e ripararsi dalle condizioni metereologiche ostili.
Alcune specie sfruttano le anfrattuosità naturali tra le rocce (Carnivori, pipistrelli, ecc.), altre le cavità degli alberi (Opossum, Criceti, Marmotte, Citelli, ecc.).
Diversi Topi selvatici (Apodemus sylvaticus Linneo, 1758), Scoiattoli (Sciuridae) e Criceti (Cricetidaei) costruiscono nidi tra il fogliame degli alberi.
Taluni Mammiferi, come Talpe, Citelli, Tassi, Moffette ed altri ancora, scavano gallerie nel terreno.
I Castori (Castor Linneo, 1758), considerati nell’immaginario gli ingegneri della Natura, costruiscono dighe e ripari nell’acqua.
Gli individui di una medesima specie non vivono isolati ma spesso si riuniscono a formare gruppi sociali più o meno stabili. La forma più semplice di aggregazione è il gruppo familiare formato da una coppia e dai propri figli.
In alcuni Mammiferi, i figli lasciano i i genitori subito dopo lo svezzamento, in altri invece rimangono con la madre fino al raggiungimento della maturità sessuale. In alcuni, come Alci (Alces), Otarie (Otariidae) ed altri, gli individui si riuniscono in branchi che migrano riuniti durante la stagione degli amori.
Durante la stagione degli amori, solitamente ciascun maschio si aggrega ad un gruppo di femmine e di figli, formando un proprio harem che difende da altri maschi.
Alcuni Mammiferi si aggregano a costituire le cosiddette bande, organizzazione sociale più complessa e numerosa, per ricerca di cibo, riproduzione e protezione.
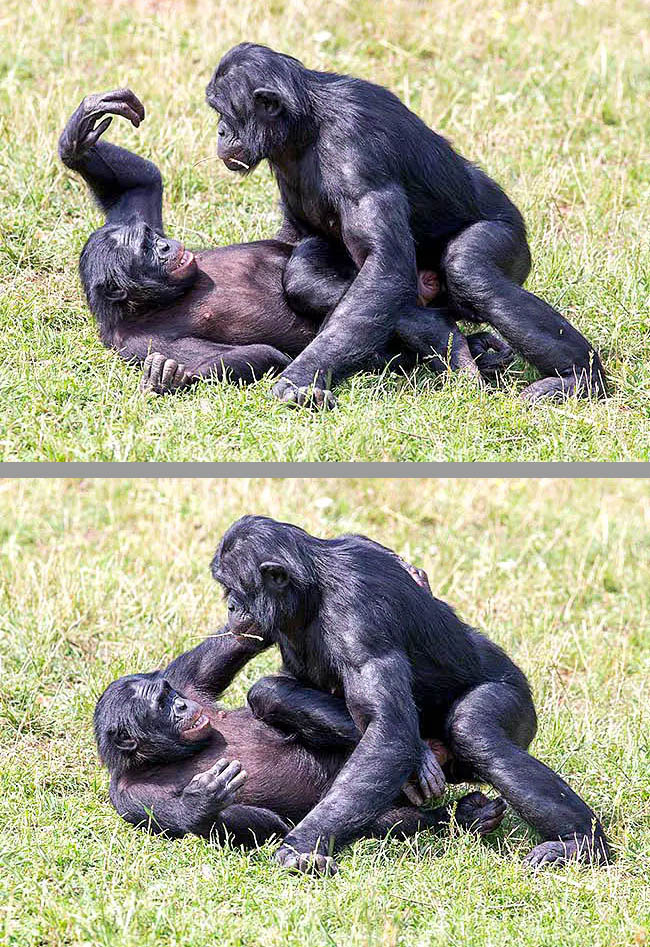
Alla comunicazione con gli sguardi si aggiunge qui quella tattile, non meno importante nei mammiferi © G. Mazza
All’interno delle bande, tra i singoli membri si stabilisce una precisa gerarchia dominate da un capo che ne controlla le attività
Ciascuna banda ha un proprio territorio ben delimitato che tutti i componenti difendono insieme. L’associazione in bande è ben sviluppato nell’ambito di varie specie di Scimmie, in particolare i Macachi.
L’UOMO E I MAMMIFERI
Sin dalla preistoria, i rapporti che legano l’Uomo agli altri mammiferi sono molteplici e legati alla sua sussistenza: per il cibo, gli indumenti, per i trasporti, il lavoro dei campi e altre necessità.
Con un processo iniziato parecchi secoli fa, diverse specie di mammiferi sono state addomesticate, ed allevati in cattività dall’Uomo, per soddisfare alle proprie necessità.
Le Pecore, le Capre, i Buoi forniscono latte e carne. I Cavalli, i Buoi, i Cammelli, i Lama ed altri ancora. sono impiegati come animali da sella, da basto e da tiro.
Il pelo del mantello di Pecore, Capre, Cammelli, ed altri mammiferi viene trasformato in filati per la preparazione di tessuti. Le pelli di molti mammiferi vengono conciate e trasformate in cuoi e pellicce.
Diversamente, parecchie specie arrecano danni alle colture e agli animali allevati.
Inoltre, alcune specie di mammiferi possono trasmettere gravi malattie all’uomo (zoonosi), quali peste, tifo, rabbia, toxoplasmosi, salmonellosi, brucellosi, leishmaniosi, idatidosi, e parecchie altre.
D’altra parte molte specie sono molto utili nel campo della ricerca medica e farmacologica per la preparazione di sieri e vaccini e per la sperimentazione di nuovi farmaci.
Parecchi mammiferi, come Cani, Gatti, Cavalli, Asini, Conigli ed altri, svolgono un ruolo importante anche nelle terapie di supporto per migliorare la salute fisica e psicologica delle persone (pet therapy).
Da parte sua l’attività antropica ha portato all’estinzione parecchie specie di mammiferi, soprattutto di quelle di medie o grosse dimensioni e di abitudini diurne.
Malgrado le misure protezionistiche emanate in numerosi paesi, la consistenza numerica di molte specie di mammiferi continua a diminuire sensibilmente.
Continuando la sconsiderata distruzione delle foreste in tutti i continenti, appare molto probabile che tra non molto tempo la maggior parte delle specie di grosse dimensioni potrà sopravvivere soltanto all’interno di parchi e riserve.
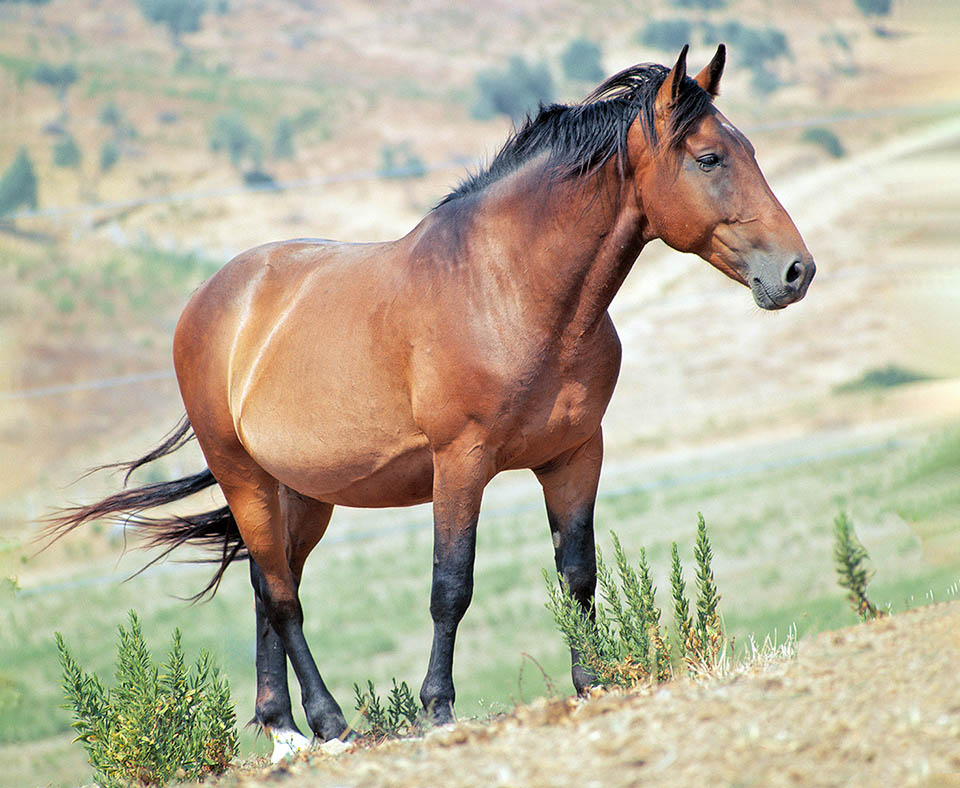
Sin dalla preistoria, i mammiferi addomesticati hanno fornito all’uomo cibo, indumenti e mezzi di trasporto. Con gli ovini e i bovini, il cavallo è stato uno dei più importanti © Giuseppe Mazza
Attualmente, diverse specie di mammiferi ad ampia distribuzione, euro-mediterranea si trovano in un preoccupante stato di minaccia.
La Lince europea (Lynx lynx Linneo, 1758), il cui areale fino a qualche tempo fa si estendeva dai Pirenei, e Alpi sino alle foreste della Siberia, è scomparsa dall’arco alpino già all’inizio del ‘900 a causa della persecuzione umana.
Il Lupo comune (Canis lupus lupus Linneo, 1758) è oggi relegato sulle Alpi Orientali.
Il Lupo appenninico (Canis lupus italicus Altobello, 1921), sottospecie diffusa nell’Europa Centro-occidentale a in Italia sulle Alpi Occidentali e sugli Appennini è in sofferenza.
Il Lupo siciliano (Canis lupus cristaldii Angelici & Rossi, 2018), sottospecie endemica delle aree boscate montane della Sicilia, si è estinta già nel XX secolo.
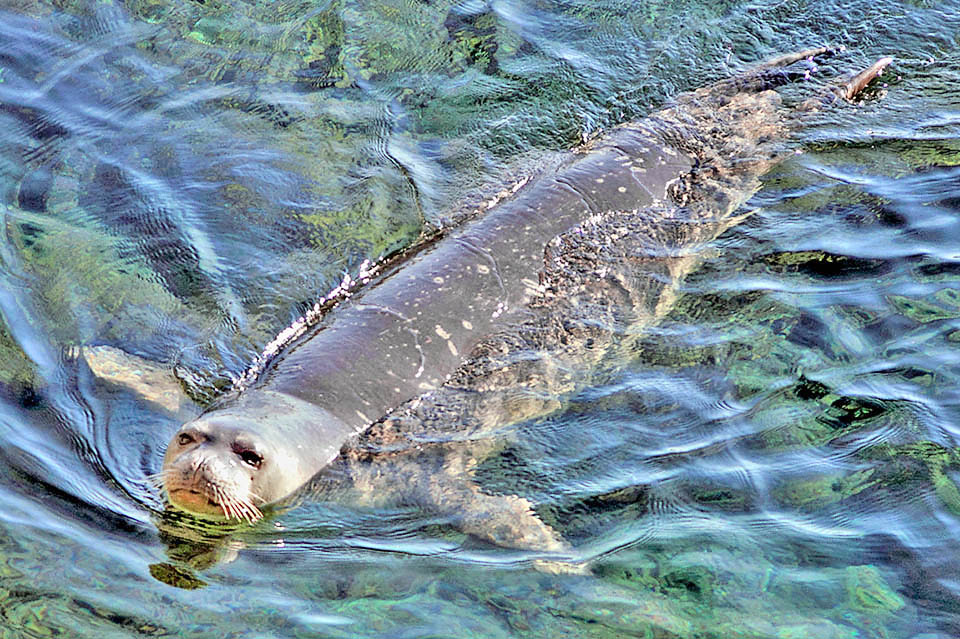
Con meno di 700 esemplari, la Foca monaca (Monachus monachus), occasionalmente avvistata lungo le coste mediterranee è una specie a forte rischio estinzione © Александр Гончаров
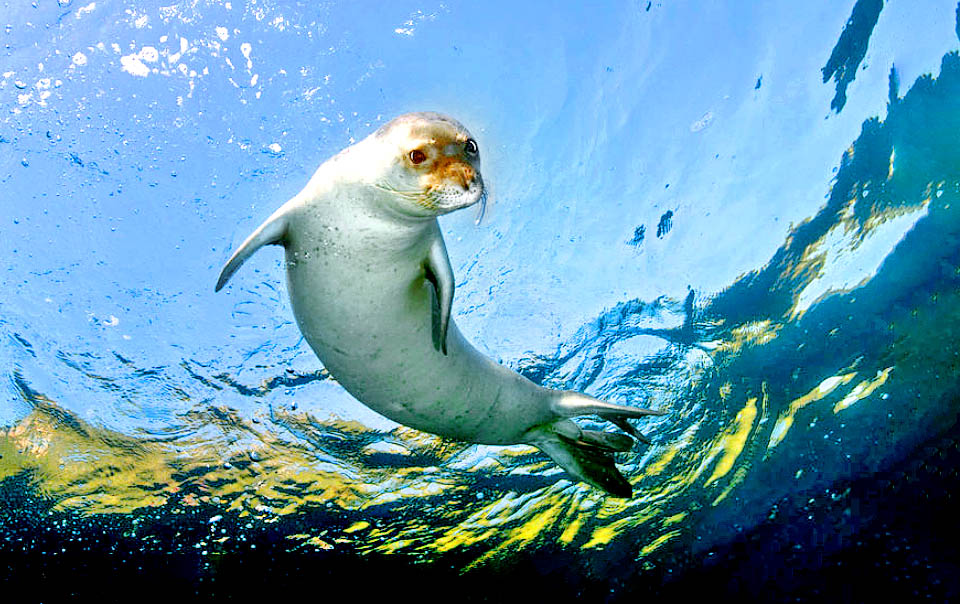
Un giovane. Potrebbe vivere 20-30 anni, ma perseguitato un tempo dai pescatori, è oggi minacciato dall’inquinamento e dai detriti plastici marini © Monk Seal Alliance
L’orso bruno eurasiatico (Ursus arctos arctos Linneo, 1758), il cui areale comprende tutta l’Eurasia settentrionale, in Italia è confinato sulle Alpi del Trentino occidentale e al confine tra Friuli, Austria e Slovenia.
Altra sottospecie è l’Orso bruno marsicano (Ursus arctos marsicanus Altobello, 1921), endemica dell’Italia centro-meridionale, ove sopravvive nel Parco Nazionale d’Abruzzo
La Foca monaca mediterranea (Monachus monachus Hermann, 1779), della quale occasionalmente vengono avvistati individui, lungo le coste di quasi tutti i paesi mediterranei, è specie a forte rischio estinzione di cui sopravvivono in natura meno di 700 esemplari.
Altri grossi Mammiferi, attualmente ridotti drasticamente di numero con consistente rischio di estinzione, sono purtroppo il Cervo (Cervus elaphus Linneo,1758), lo Stambecco delle Alpi (Capra ibex Linneo, 1758, e il Capriolo (Capreolus capreolus Linneo, 1758).
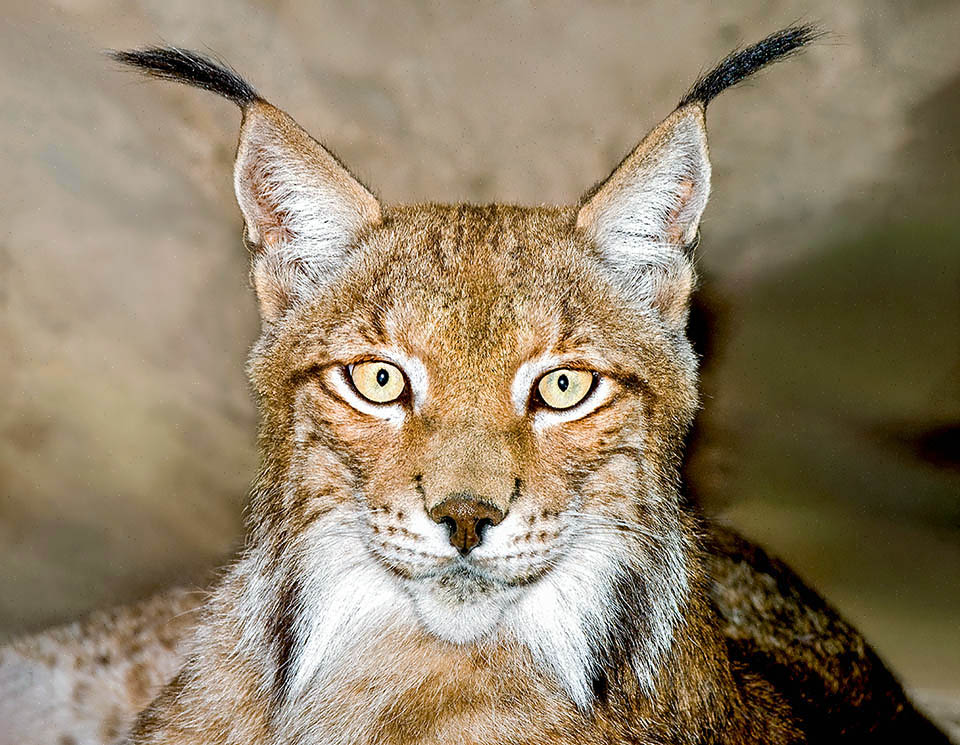
La Lince (Lynx lynx), un tempo diffusa dai Pirenei alla Siberia, è sparita dall’arco alpino per la persecuzione umana © Giuseppe Mazza
Il Muflone (Ovis gmelini musimon) presente in tutta Europa ed è ovunque minacciato in quanto oggetto di un pesante prelievo venatorio.
E per finire anche il Camoscio alpino (Rupicapra rupicapra, Linneo, 1758), oggi presente nei sistemi montuosi del centro e del sud dell’Europa, il Camoscio dei Pirenei (Rupicapra pyrenaica pyrenaica Bonaparte 1845), confinato sui Pirenei, e il Camoscio appenninico o d’Abruzzo (Rupicapra pyrenaica ornata Neumann, 1899), endemico dell’Appennino centrale, necessitano di una continua protezione ed assistenza per garantirne la sopravvivenza.
Soltanto alcuni micromammiferi, nonostante l’attività di caccia, non hanno subito alcun decremento numerico, anzi sono stati favoriti grazie alla rarefazione o alla scomparsa di molti dei loro predatori.
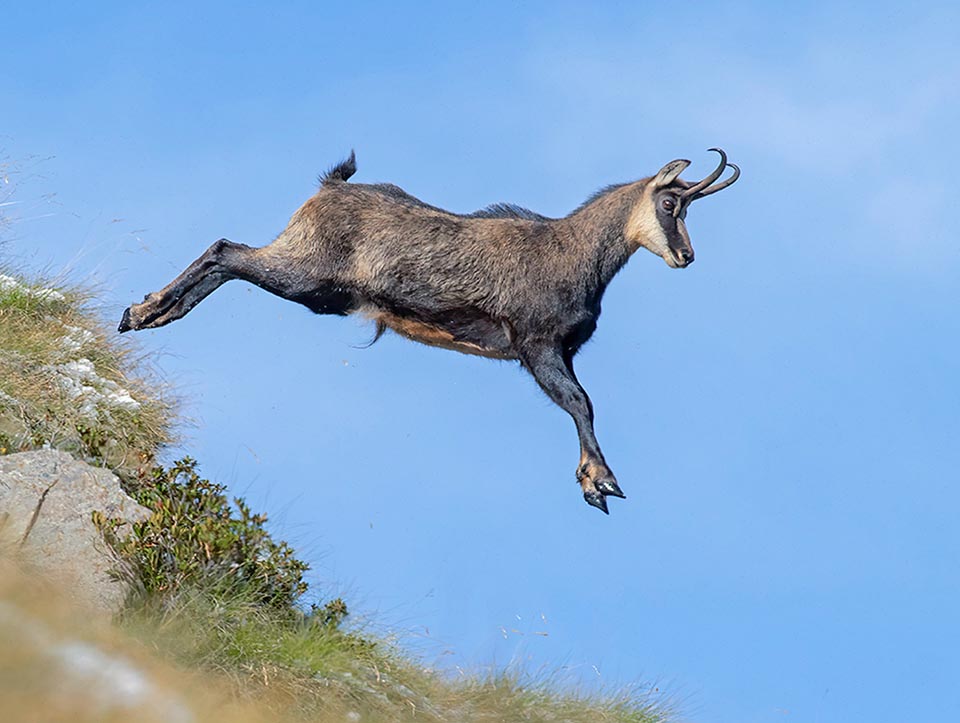
A causa della caccia e dell’isolamento geografico, alcune sottospecie del Camoscio (Rupicapra rupicapra) sono oggi oggetto di protezione © Emilio Ricci
ORIGINE E PERCORSO EVOLUTIVO DEI MAMMIFERI
L’inizio della storia evolutiva dei Mammiferi viene fatta risalire ad oltre 300 milioni di anni fa, a partire da un ramo dei Synapsida, vasto gruppo di vertebrati tetrapodi terrestri dall’aspetto di una grande lucertola, in quell’epoca molto diffuso e nel quale vengono compresi anche gli attuali mammiferi. Occorre precisare che, nonostante il loro aspetto esteriore, i Synapsida preistorici non erano rettili (Reptilia) veri e propri, ma una linea evolutiva distinta e parallela.
Senza entrare in dettagli speculativi di dotte dissertazioni filogenetiche, non è questa la sede, e pur consapevoli che l’origine dei Mammalia è una questione paleontologica molto complessa e per certi versi ancora non consolidata, condividiamo il parere degli studiosi ampiamente concorde nel ritenere che i mammiferi moderni siano un gruppo monofiletico che ha preso origine nel tardo Triassico, circa 225 milioni di anni fa, proprio da un raggruppamento di Synapsida, precisamente quello dei Cynodontia.
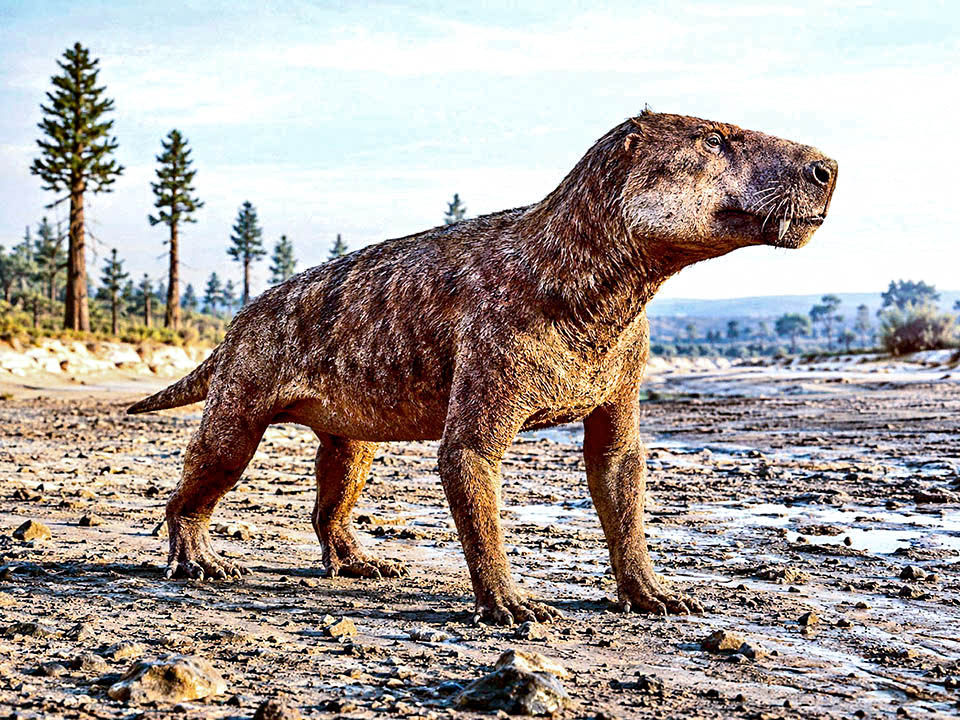
Cynognatus – Immagine generata con intelligenza artificiale da Giuseppe Messina
Così denominati per la caratteristica morfologica più evidente di avere “denti di cane”, i Cynodontia deponevano le uova come i Rettili ed è ritenuto probabile che fossero animali a sangue caldo e avessero il corpo ricoperto di peli. Fu proprio nel Triassico che i Cynodontia, si frazionarono in due linee evolutive che per comodità espositiva chiameremo Cynodontia non mammiferiformi e Cynodontia mammiferiformi.
Cynodontia non mammiferiformi
Nel corso del loro percorso evolutivo, occuparono diverse nicchie ecologiche, come carnivori ed erbivori. Sopravvissuti alla grande estinzione di massa del Permiano-Triassico avvenuta circa 252 milioni di anni fa, sono scomparsi gradualmente del Cretaceo inferiore, circa 140 milioni di anni orsono. Il declino e la definitiva scomparsa di questo ramo vengono imputati alla competizione con i dinosauri e soprattutto con quella dei veri mammiferi, nati nel frattempo proprio per evoluzione dei Cynodontia mammiferiformi.
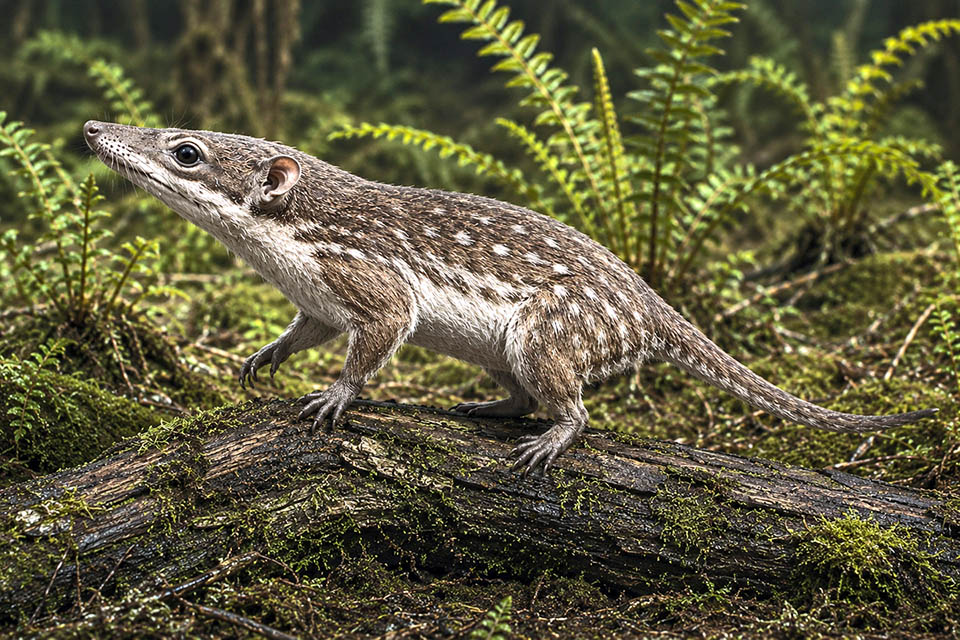
Adelobasileo – Immagine generata con intelligenza artificiale da Giuseppe Messina
Cynodontia mammiferiformi
Mentre la storia evolutiva del ramo non mammiferiforme dei Cynodontia si concludeva con la sua estinzione, quello dei Cynodontia mammiferiformi invece proseguiva e si affermava diversificandosi sempre più nei veri mammiferi. Tra le forme di transizione tra i cinodonti mammiferiformi e i primi mammiferi spicca l’Adelobasileo (Adelobasileus cromptoni), piccolo e agile animale vissuto nella regione oggi corrispondente al Nord America nel Triassico superiore, 225-220 milioni di anni fa.
Primi Antenati e Mammiferi Arcaici
Agli albori della loro comparsa sulla scena dei viventi, gli antenati degli attuali Mammiferi erano piccoli, 10-20 cm per pochi grammi, simili a toporagni o topi, con abitudini notturne e pelliccia folta per difendersi dal freddo. La taglia ridotta e il favore del buio li aiutavano a sfuggire ai dinosauri carnivori.

Kayentatherium – Immagine generata con intelligenza artificiale da Giuseppe Messina
Tra i mammiferi tra i più arcaici si ricordano le specie appresso citate.
Il Morganucodonte (Morganucodon), animale dalle dimensioni del Topo comune comparso oltre 200 milioni di anni fa ed estinto 170-160 milioni orsono. Il Kayentatherium, cinodonte del Giurassico inferiore, aveva dimensioni paragonabili a quelle di un grosso gatto.
Per diverse caratteristiche, quali pelo parziale, denti specializzati, incisivi, canini, molari, e postura semi-eretta, questa specie viene ritenuta tra i probabili progenitori dei Mammiferi. Diffusa nell’America settentrionale, questa specie è scomparsa circa 180 milioni di anni fa, molto prima della grande estinzione dei dinosauri non aviani. La vita per questi primitivi Mammiferi non era certamente facile, specialmente per la presenza di numerosi e temibili predatori.
Dinosauri predatori dei piccoli Mammiferi

Velociraptor – Immagine generata con intelligenza artificiale da Giuseppe Messina
Particolarmente temuti erano Microraptor, Sinornithosaurus e Deinonychus, dinosauri carnivori di piccole e medie dimensioni feroci predatori anche di piccoli mammiferi.
Nello specifico, il Microraptor era di taglia molto ridotta, all’incirca come quella di un corvo. Aveva il corpo ricoperto di piume, quattro ali e caratteristiche penne sulle zampe.
Era diffuso nelle foreste subtropicali e temperate dell’Asia nord-orientale ove conduceva vita semi-arboricola. Visse nel Cretaceo inferiore, circa 125-113 milioni di anni fa.
Dimensioni maggiori, paragonabili a quelle di un grosso tacchino, le raggiungeva lo Sinornithosaurus, un dinosauro carnivoro anch’esso piumato, come evocato dal nome scientifico che significa “lucertola uccello cinese”. Tipicamente provvisto di lunghi canini con un morso forse velenoso, era diffuso in Cina nord-orientale, ove popolava gli ambienti boschivi umidi e temperati estinguendosi sempre nel Cretaceo inferiore.
Altro predatore particolarmente temibile per i piccoli e primitivi Mammiferi era Deinonychus, dinosauro carnivoro piumato che raggiungeva dimensioni paragonabili a quelle di un lupo. Provvisto di grandi artigli falciformi, da cui il nome scientifico che vuol dire “terribile artiglio”, questo dinosauro era diffuso nel nord America e viveva preferibilmente in aree boschive, ove cacciava in branco. Si estinse intorno ai 100 milioni di anni fa.
Chiude questa breve rassegna di predatori di Mammiferi in epoche preistoriche, il Velociraptor, un dinosauro carnivoro che popolava gli ambienti desertici dunosi dell’Asia centrale.
Grande come un grosso tacchino, aveva il corpo ricoperto di piume e sugli arti anteriori portava penne simili a quelle degli uccelli odierni.
La bocca era armata di circa 30 denti affilati e seghettati e il secondo dito di ciascun piede era dotato di un grande artiglio uncinato e retrattile con il quale agganciava e immobilizzava la preda.
Visse nel Cretaceo superiore, estinguendosi circa 71 milioni di anni fa.
A parte la spietata caccia subita, i mammiferi primordiali sono stati comunque costretti a vivere all’ombra della forte competizione dei dinosauri, che dominavano praticamente gli ambienti terrestri, marini e aerei fino alla loro scomparsa definitiva avvenuta 66 milioni di anni fa.
Estinzione di massa del Cretaceo-Paleocene
Circa 66 milioni di anni orsono avvenne un evento catastrofico che modificò radicalmente la biodiversità vegetale e animale sul nostro Pianeta e il destino dei nostri antenati.
Si tratta dell’estinzione di massa del Cretaceo-Paleogene (evento K-Pg), provocata dall’impatto di un gigantesco asteroide di 10-15 km, testimoniato dal cratere di Chicxulub nella penisola dello Yucatán.
L’impatto scatenò tsunami, incendi e un’ondata di calore iniziale, seguita da una immensa nuvola di polveri che oscurò il sole per un lungo “inverno nucleare”.
Private della luce, e quindi impossibilitate a svolgere il processo di fotosintesi, le piante morirono causando il collasso degli ecosistemi in pochi mesi o anni.
Questo portò alla scomparsa dei grandi erbivori e dei loro predatori carnivori.
Alcune ricerche geologiche recenti in Nord America evidenziano come lo shock termico estremo immediato abbia amplificato la mortalità globale. Comunque si siano svolti i dettagli, si consumò una tragedia che cancellò circa il 75% delle specie viventi, inclusi tutti i dinosauri non aviani.
I mammiferi dopo i dinosauri
Fatale per i dinosauri, la grande estinzione di massa del Crataceo-Paleocene risparmiò invece diverse forme ancestrali di mammiferi. Questi piccoli animali sopravvissero grazie alla dieta insettivora e onnivora, al metabolismo a sangue caldo e a uno stile di vita prevalentemente notturno.
Con la scomparsa dei grandi predatori e la liberazione di innumerevoli nicchie ecologiche, per i mammiferi ebbe inizio una straordinaria radiazione adattativa. Liberi dalla competizione, poterono esplorare nuovi territori, sfruttare abbondanti risorse alimentari e, gradualmente, conquistare anche gli spazi diurni.
Da quel momento in poi, la Terra attraversò un intenso e complesso cammino evolutivo, segnato da sconvolgimenti tettonici e imponenti spinte orogenetiche che hanno ridisegnato la geografia del pianeta; fluttuazioni climatiche con l’alternarsi ciclico di fasi di profondo raffreddamento e grandi riscaldamenti globali; flussi migratori su vasta scala, accompagnati dalla continua comparsa e scomparsa di innumerevoli specie animali.
Considerati gli scopi divulgativi di questa trattazione e l’immensa complessità dell’argomento, eviteremo i dettagli superflui per tracciare un sintetico excursus cronologico.
Ci concentreremo sugli eventi geo-climatici essenziali e sulle variazioni ecologiche e biogeografiche dell’area afro-eurasiatica (il “Vecchio Mondo”), facendo partire la nostra cronaca a partire dalla fine del Paleocene.
Deriva dei continenti e evoluzione paleogeografica
Durante il Paleocene, circa 60 milioni di anni fa, l’Eurasia presentava una configurazione geografica alquanto diversa da quella attuale.
Allora la placca euroasiatica, derivata dall’antico supercontinente della Laurasia, era divisa in due dallo Stretto di Turgai, lungo braccio poco profondo dell’Oceano Tetide che separava il blocco europeo a occidente da quello asiatico a oriente per diverse migliaia di chilometri.
In quel periodo, l’area geografica del blocco europeo era costituita da un arcipelago di isole circondate da mari poco profondi.
A sua volta, la parte meridionale dell’antico Oceano Tetide, che separava la Laurasia dal Gondwana, continuava a chiudersi a causa dell’avvicinamento tra la placca africana e quella euroasiatica
Fu allora che le prime interazioni tra le microplacche e il margine meridionale dell’Europa diedero l’avvio alla futura formazione delle Alpi.
In quei tempi, la Terra godeva di un clima caldo e umido con grandi aree ricoperte da fitte foreste.
Massimo Termico del Paleocene-Eocene (PETM)
Circa 56 milioni di anni fa, il Massimo Termico del Paleocene-Eocene (PETM) portò un forte riscaldamento globale della durata di 150-200 mila anni.
Il Pianeta si trasformò in una serra, con foreste lussureggianti estese fino ai poli. Questo clima caldo creò un corridoio a latitudini elevate che favorì la rapida diffusione di animali in Eurasia e Nord America.
Nello stesso periodo, i movimenti delle placche tettoniche unirono terre prima separate e attivarono importanti eventi di formazione delle montagne. Insieme al clima caldo, questa unione continentale accelerò l’evoluzione dei primi piccoli mammiferi, dando origine ai grandi gruppi moderni: Prototheria, Metatheria ed Eutheria.
Nella fase iniziale del riscaldamento arrivarono in Eurasia anche gli antenati dei veri Primati
(Euprimates). Questi animali erano già adattati alla vita sugli alberi: avevano un cervello più grande, occhi frontali per la visione stereoscopica, dita prensili e unghie al posto degli artigli.
Primati e Mammiferi Arcaici del Paleocene-Eocene
Circa 56 milioni di anni fa, durante il massimo termico del Paleocene-Eocene, il clima di Nord America ed Europa era caldo, umido e di tipo tropicale.
In questo scenario si diffusero: Adapis, lontano parente dei lemuri; Eosimias, piccolissimo primate scoperto in Cina; Teilhardina: primate di piccole dimensioni simile a un uistitì sudamericano; il Fenacodo (Phenacodus), vissuto nell’ Eocene e ampiamente diffuso in tutto il Nord America e in Europa, era un animale le cui dimensioni non superavano in genere il metro di lunghezza.
Di conformazione snella e con zampe dotate di 5 dita, il Fenacodo viveva prevalentemente in habitat con vegetazione folta e umida delle foreste tropicali e subtropicali di quell’epoca.
Di abitudini prevalentemente terricole, aveva una dieta principalmente erbivora che in parte integrava con piccoli invertebrati.
Il Fenacodo è ritenuto il progenitore dei Perissodactyla (cavalli, rinoceronti, tapiri) e degli Artiodactyla (maiali, pecore, mucche, cervi, ippopotami). Da esso derivò probabilmente l’Hyracotherium, il primo antenato dei cavalli.
Altro mammifero arcaico di quell’epoca è il Purgatorius, genere diffuso nel Nord America da oltre 60 milioni a circa 50 milioni di anni fa (Eocene medio).
Di aspetto simile a scoiattoli o toporagni, i Purgatorius erano piccoli animali che generalmente raggiungevano la lunghezza di circa 10-15 cm, oltre la lunga coda utilizzata per bilanciarsi, e un peso complessivo di appena 30-100 grammi. Le zampe avevano 5 dita.
Abili arrampicatori arboricoli, considerati precursori dei primati, si cibavano di frutta e invertebrati.
In quel periodo, alcune specie di mammiferi, in relazione alla sopraggiunta grande disponibilità di alimento vegetale, subirono un rapido e vistoso aumento di dimensioni.
Tra questi spiccano i Titanoides, genere che riunisce specie che verosimilmente superavano anche i 2,5 m di lunghezza e un peso che doveva raggiungere di circa 2 quintali.
I Titanoides avevano zampe robuste con le dita armate di forti e lunghi artigli utilizzati per strappare radici e vegetazione delle paludi subtropicali di cui si cibavano.
Vissuti circa 61-55 milioni di anni fa, i Titanoides vivevano in un areale geografico limitato esclusivamente al Nord America e si sono estinti senza lasciare discendenti diretti circa 55 milioni di anni fa, alla fine dell’Eocene.
Concludiamo questa breve rassegna dedicata a progenitori del Paleocene-Eocene degli attuali Mammiferi con il Pakicetus, genere di Mammiferi ancestrali vissuti circa 50 milioni di anni fa.
Animali carnivori e di abitudini terrestri, i Pakicetus si distinguevano per avere muso allungato, coda spessa e lunga e zampe dotate di zoccoli, similmente agli antichi ungulati. L’aspetto di questi Mammiferi ricordava quello di un cane o di un lupo e le dimensioni raggiungevano circa 1,5 m di lunghezza.
Vissuti nell’area corrispondente all’attuale Pakistan, questi animali occupavano di preferenza habitat di acque poco profonde o in prossimità di corsi d’acqua ove si nutrivano cacciando pesci.
La particolare importanza di questo animale deriva dal fatto che, sulla base dello studio della configurazione scheletrica ed in particolare dell’osso timpanico dell’orecchio interno, attualmente viene ritenuto l’antenato più primitivo dei moderni Cetacea.
Abbassamento termico e Grande Coupure
Passa il tempo e circa 34- 36 milioni di anni fa, alla fine dell’Eocene e all’inizio dell’Oligocene, si è verificato un brusco abbassamento della temperatura del Pianeta con la formazione dei primi ghiacci permanenti in Antartide.
Questo fenomeno ha anche fortemente ridotto l’areale delle foreste a favore di praterie e savane ed è stato causa della scomparsa di oltre il 60% delle specie di mammiferi autoctoni allora viventi in Europa e in Nord America.
Durante quell’evento, noto come Grande Coupure e per circa 500 mila anni ancora, in Europa si sono estinte forme ancestrali ed endemiche di marsupiali, primati e roditori.
A sua volta, la scomparsa della fauna autoctona ha favorito l’immigrazione dall’Asia di nuove specie pronte ad occupare le nicchie ecologiche rimaste libere.
L’ondata migratoria ha portato in Europa ruminanti classici, come i Tragulidae, antichi parenti degli Ippopotami (Anthracotheriidae), e piccoli erbivori simili a cervi primitivi (Celocidae), noti come Cervi topo, grandi come conigli e ritenuti vicini ai Suidii (Suidae).
In definitiva, la Grande Coupure ha rappresentato un punto di svolta decisivo per l’evoluzione degli attuali Mammiferi.
Si sollevano le prime grandi catene montane dell’Eurasia
Passarono gli anni e arrivati all’Oligocene inferiore, circa 30-35 milioni di anni fa, l’Eurasia fu interessata da una intensa attività tettonica. In particolare, la spinta delle placche meridionali, Africa e India, contro il margine euroasiatico determinò il sollevamento delle prime grandi catene alpine-himalayane.
L’Oceano Tetide si ridusse e si frazionò in bacini minori.
Scomparve lo Stretto di Turgai e si stabilì una solida e continua connessione territoriale all’interno del blocco euroasiatico.
Nel frattempo, si formarono anche ponti terrestri temporanei tra continenti causati da variazioni del livello del mare e spinte tettoniche.
Poco più di 23 milioni di anni fa, sul finire dell’Oligocene, tale situazione ambientale avrebbe anche favorito la comparsa in Eurasia di forme erbivore terrestri di grandi dimensioni dei quali i Rinoceronti giganti (Paraceratherium) sono i rappresentanti più singolari.
Di imponenti dimensioni, anche a 8 m di lunghezza per un peso stimato di 15- 20 t, i Rinoceronti giganti avevano zampe lunghe e colonnari simili a quelle di un elefante. L’altezza al garrese anche superiore ai 5m e il collo allungato, consentivano a questi enormi animali di nutrirsi del fogliame degli alberi al pari di un’attuale Giraffa.
Vissuti in Eurasia tra 34 e 23 milioni di anni fa, i Rinoceronti giganti si sarebbero estinti all’inizio del Miocene, in coincidenza con importanti cambiamenti climatici e ambientali.
All’inizio del Miocene, circa 20 milioni di anni orsono, avvenne la definitiva chiusura dell’Oceano Tetide e cominciò il congiungimento definitivo tra il margine orientale della placca euroasiatica e il blocco afro-arabico, interrompendo così i grandi scambi d’acqua tra gli oceani.
In quell’epoca, l’area mediterranea era costituita da un mare caratterizzato da tipici ampi archi insulari e microplacche in movimento.
Evento dei Proboscidati (Proboscidean Datum Event) e Miocene Climatic Optimum
Qualche tempo dopo, all’incirca siamo arrivati a circa 20 milioni di anni orsono, la Terra entrò in una fase di progressivo riscaldamento che pressappoco 3-5 milioni di anni dopo avrebbe raggiunto il picco termico del Miocene Climatic Optimum.
Allora il clima dell’Europa incominciò a diventare caldo e umido favorendo la crescita di grandi estensioni di fitte foreste temperate e subtropicali che si continuavano verso l’Asia.
Inoltre, i ghiacci dell’Antartide diventarono molto più ridotti degli attuali e conseguentemente il livello del mare era più alto.
In quell’epoca, approfittando della chiusura dell’Oceano Tetide e dei cosiddetti “ponti”, collegamenti territoriali causati dallo scontro tra la placca africana e quella eurasiatica, grandi Mammiferi africani dell’ordine dei Proboscidati, quali Mastodonti e Gomfoteri, parenti dei Mammut e degli attuali Elefanti, hanno dato luogo ad una imponente migrazione iniziata dall’Africa e che si è sviluppata ampiamente nel continente euroasiatico.
Partecipò a questo evento, noto come Evento dei Proboscidati (Proboscidean Datum Event), il Gomphotherium, grande proboscidato di aspetto simile agli attuali Elefanti ma provvisto di 4 zanne, delle quali le due inferiori erano allungate e piatte, utilizzate come pale per scavare e raccogliere il cibo.
Diffuso in gran parte dell’Eurasia, penisola italiana e Sicilia compresi, questo genere sarebbe scomparso dall’Europa circa 10 milioni di anni fa.
Allora c’era anche il gigantesco Zygolophodon, tra i più grandi mammiferi terrestri, che si propagò in tutta l’Eurasia, Italia settentrionale compresa, ove era frequente in ambienti boschivi umidi.
Considerato il taxon da cui si è successivamente originato il Mastodonte o Mammut di Borson (Mastodon borsoni), lo Zygolophodon sarebbe scomparso dai territori mediterranei 2,5-3 milioni di anni fa.
All’Evento dei Proboscidati prese parte anche il Mastodonte d’Avernia (Anancus arvernensis), che a partire da circa 8,5 milioni di anni fa popolò le fitte foreste umide e subtropicali dell’Eurasia, compresa l’Italia centro-settentrionale, dove i suoi resti fossili sono ampiamente documentati.
Il Mastodonte d’Avernia era un proboscidato preistorico provvisto di tipiche zanne dritte e molto lunghe, sino a 4 m, e di mole massiccia, paragonabile a quella di un attuale Elefante africano.
Questa specie scomparirà all’inizio del Pleistocene, circa 2 e 1,5 milioni di anni fa.
Evento di Monterey – Middle Miocene Climatic Transition (MMCT)
Il grande caldo del Miocene Climatic Optimum finisce circa 14 milioni di anni fa.
A quella data si conclude la fase di massimo calore e inizia la transizione climatica del medio Miocene con un progressivo e marcato raffreddamento globale
Il marcato abbassamento termico provocò la contrazione delle foreste a favore delle praterie aperte.
Nelle nuove praterie arrivarono e si svilupparono Cavalli, Asini e Zebre (Equidae), Perissodattili con zampe tridattile.
Quel periodo, noto con i nomi di Evento di Monterey e Middle Miocene Climatic Transition (MMCT), era caratterizzato da fluttuazioni climatiche, da una notevole attività vulcanica sottomarina e subaerea e da una elevata eutrofizzazione oceanica determinata da un ciclo di una significativa deposizione di carbonio organico sui fondali.
Fu allora che il panorama della biodiversità animale e vegetale cominciò decisamente ad assumere un aspetto molto simile a quello attuale.
Chiusura dello Stretto di Gibilterra e Crisi di salinità del Mediterraneo
Circa 6 milioni di anni fa, verso la conclusione dell’epoca miocenica, la collisione delle placche tettoniche, euroasiatica e africana, provocò la formazione di una sorta di diga naturale che chiuse lo Stretto di Gibilterra, collegando la penisola iberica con il Nordafrica, e trasformò il Mediterraneo in un mare chiuso.
Il mancato afflusso idrico proveniente dall’Oceano Atlantico e l’intensa evaporazione portarono al disseccamento quasi totale del bacino del Mediterraneo che in breve assunse l’aspetto di una sterminata depressione desertica con isolate salamoie ipersaline.
Tale evento, noto come Crisi di salinità del Messiniano, ha avuto come conseguenza la massiccia scomparsa di fauna marina mediterranea con la perdita di quasi il 90% delle sue specie autoctone.
Scomparvero del tutto i precedenti ambienti di barriere coralline.
D’altra parte, la nascita di nuovi ponti di terra a seguito del quasi totale prosciugamento del Mediterraneo ha consentito a diverse specie terrestri, soprattutto di Mammiferi, di spostarsi liberamente tra l’Africa e l’Europa, Italia compresa.
Fu allora che Roditori africani come il Myocricetodon, oltre a primitivi ippopotami ed elefanti, utilizzando i ponti di terra sono arrivati in Europa e colonizzarono le isole vicine.
Alluvione Zancleana
Ma il panorama geografico cambiò nuovamente dopo circa 700 mila anni.
Infatti, circa 5,3 milioni di anni fa, a cavallo tra il Miocene e il Pliocene, il Mediterraneo tornò nuovamente ad essere un bacino aperto a seguito dello sprofondamento della barriera che aveva tenuto chiuso lo Stretto di Gibilterra.
La riapertura dello Stretto scatenò un’enorme cascata d’acqua che dell’Oceano Atlantico si riversò nel Mediterraneo quasi del tutto prosciugato (Alluvione Zancleana).
Oltre a riempire d’acqua la depressione mediterranea, l’Oceano Atlantico riportò anche nuove specie, e con esse la vita quasi scomparsa completamente.
C’è voluto parecchio tempo affinché nel Mediterraneo venissero ripristinate le primitive condizioni di vita.
La nuova biodiversità del Mediterraneo, tributaria pressoché totalmente a quella atlantica, ha impiegato praticamente oltre un milione di anni per attestarsi a livelli confrontabili a quelli esistenti prima della crisi di salinità del Messiniano.
Mid-Pliocene Warm Period
Sul finire del Pliocene, circa 3-3.5 milioni di anni fa, la Terra attraversò un lungo periodo di calore globale noto come Mid-Pliocene Warm Period. In quel periodo, grazie anche ad una maggiore piovosità, vaste aree dell’Europa meridionale e della penisola italiana erano ricoperte da foreste fitte e umide mentre in regioni come Calabria e Sicilia, dominavano gli arbusti e sclerofille della macchia mediterranea primordiale.
Tra i grandi Mammiferi che caratterizzano il panorama faunistico europeo quell’epoca c’era il Rinoceronte etrusco (Stephanorhinus etruscus), diffuso in Eurasia in ambienti di bosco aperto e prateria alberata
Verso la fine del Pliocene, poco meno di 3 milioni di anni fa, il Rinoceronte etrusco si spinse stabilmente nel sud Europa, Italia compresa.
Nello stesso periodo comparve in Eurasia l’Elasmoterio (Elasmotherium), il cosiddetto Unicorno siberiano, un grande rinoceronte asiatico con un immenso corno frontale adattato alle steppe fredde.
Questi grandi animali si estinsero circa 40.000 anni fa, durante il Pleistocene superiore, a causa dei cambiamenti climatici che ridussero le steppe aperte di cui si cibavano.
Il periodo caldo del Pliocene medio si era già chiuso in precedenza: circa 2,6 milioni di anni fa, infatti, terminò il Neogene (e con esso il Terziario) e la Terra entrò nel Quaternario, l’era geologica in cui viviamo.
Fluttuazioni climatiche e Flussi migratori
Il Quaternario si caratterizza principalmente per l’alternarsi di periodi molto freddi (glaciazioni) e periodi temperati (interglaciali) che hanno provocato rispettivamente l’espansione e il ritiro dei ghiacciai con notevoli conseguenze per i popolamenti faunistici, oltre che vegetazionali.
Durante le ripetute fasi glaciali del Pleistocene, le grandi quantità d’acqua imprigionate dai ghiacci fecero abbassare di diversi metri il livello del Mar Mediterraneo.
In quei periodi la parte centro-settentrionale del Mare Adriatico diventò una grande estensione arida che univa la penisola italiana con quella balcanica consentendo il passaggio di flussi migratori.
L’avanzata dei ghiacci verso le regioni temperate ha spinto anche parecchie specie di Mammiferi delle regioni artiche e delle montagne a migrare verso sud o a vivere ad altitudini inferiori per sfuggire al gelo.
In quell’epoca, i Mammiferi diventarono i dominatori del panorama faunistico e nel contempo le penisole del Sud Europa (iberica, italiana, balcanica e greca) svolsero l’importante ruolo di aree di rifugio, vere e proprie culle della biodiversità.
Durante le glaciazioni del Pleistocene, diversi Mammiferi di grande mole e ben adattati al freddo, seguendo diverse rotte migratorie si spinsero nell’Europa centrale e meridionale ove colonizzarono nuovi habitat liberi e svilupparono caratteristiche utili per sopravvivere alle rigidità dell’Era Glaciale.
Fu allora che ai primi antenati dei Proboscidati, quali Elefanti, Mammut e Mastodonta che erano arrivati in precedenza in Eurasia, ancor prima del Miocene Climatic Optimum, si aggiunsero altre nuove forme.
Tra le tante specie immigrate in quell’epoca, si ricorda il Mammut meridionale (Mammuthus meridionalis), che dall’inizio del Pleistocene inferiore, circa 2,6 milioni di anni fa, dall’Asia Minore e dall’Europa orientale si propagò ampiamente nel continente europeo, penisola italiana compresa.
Si ipotizza che in tempi successivi, poco meno di 2 milioni di anni orsono, da alcune popolazioni orientali del Mammut meridionale si sia differenziato il Mammut delle steppe (Mammuthus trogontherii) che dai luoghi d’origine si diffuse anche in Siberia dove nella parte orientale si sarebbe differenziato circa 800 mila anni fa il Mammut lanoso (Mammuthus primigenius).
Pare anche che, sotto la spinta, della notevole espansione dei ghiacciai e dell’adattamento al freddo estremo, il Mammut delle steppe si sia successivamente evoluto nel noto Mammut lanoso. A causa della notevole espansione dei ghiacciai e sempre favorito dall’adattamento al freddo estremo, il Mammut lanoso si diffuse sino all’Europa occidentale, comprese le aree settentrionali della penisola italiana.
Con il passare del tempo, il numero delle specie faunistiche immigrate in Eurasia continuò ad arricchirsi con nuovi arrivi.
Sempre all’inizio del Pleistocene ma durante i periodi interglaciali, poco meno di 2 milioni di anni orsono, dal continente africano arrivarono gli antenati dell’Ippopotamo europeo antico (Hippopotamus antiquus) che si diffuse anche in Europa meridionale, spingendosi anche nelle penisole italiana e balcanica.
L’Ippopotamo europeo scomparve progressivamente nel corso del Pleistocene e non si hanno sufficienti elementi che ne attestano l’arrivo in Sicilia.
Passa il tempo e arrivati a circa 1,5 milioni di anni orsono, a seguito della riduzione delle foreste a favore delle praterie, causata dell’inasprimento del clima freddo e arido, il fenomeno migratorio registrò l’arrivo del Bisonte arcaico cinese (Bison palaeosinensis), un ruminante della famiglia dei Bovidae che dall’Asia si diffuse nell’Europa occidentale e meridionale, fino alla penisola italiana.
Nei nuovi territori, da questi Bisonti primitivi si sarebbero nel tempo originate le specie europee più note del genere, come il Bisonte delle boscaglie (Bison schoetensacki) e il Bison degiulii.
In seguito, fece la sua comparsa il grande Bisonte della steppa (Bison priscus). Di grandi dimensioni, circa 3 m di lunghezza, con oltre 2 m di altezza al garrese e un peso che poteva arrivare anche a 1,5 t, il Bisonte della steppa si caratterizzava per il cranio strutturalmente primitivo e le corna più corte e slanciate rispetto ai Bisonti attuali.
Grande erbivoro, questa specie occupava un areale vastissimo che si estendeva in tutta l’Eurasia e il Nord America ove prediligeva gli habitat della steppa freddi e aperti.
In Sicilia, a seguito dell’isolamento si è differenziata la sottospecie Bison priscus siciliae.
Circa 700 mila anni fa, parecchio tempo dopo il già citato Proboscidean Datum Event, con le prime fasi glaciali pleistoceniche è avvenuta una prima ondata migratoria dell’Elefante dalle zanne dritte (Palaeoloxodon antiquus), animale di grande mole, anche oltre 4 m di altezza al garrese per un peso di circa 13 t, che si diffuse in gran parte dell’Europa centro-occidentale.
Attraverso ponti di terra affiorati in conseguenza dell’abbassamento del livello del mare durante le fasi glaciali, popolazioni dell’Elefante dalle zanne dritte sono pervenute anche in Sicilia.
Più tardi, a seguito del lungo isolamento di queste popolazioni, per effetto del processo di nanismo insulare si sarebbe differenziato l’Elefante nano di Sicilia (Palaeoloxodon falconeri), proboscidato che non raggiungeva il metro di altezza.
Questa specie si sarebbe estinta circa 400 mila anni fa.
Tra gli arrivi di quell’epoca c‘era anche il Rinoceronte di Merck o Rinoceronte delle foreste (Stephanorhinus kirchbergensis). Era questa una specie di grandi dimensioni che dall’Asia centrale è arrivata, circa 700-600 mila anni fa, in Europa e in Italia, popolando boschi e savane dove trovava rifugio e abbondante cibo costituito da fogliame e arbusti. Questa specie è l’unico rinoceronte la cui presenza in Sicilia è testimoniata in specifici depositi pleistocenici dell’isola.
Durante le fasi glaciali più rigide, circa 450 mila anni fa, dall’Asia è arrivato il Rinoceronte lanoso (Coelodonta antiquitatis). Questa specie si è ampiamente diffusa in Europa anche con successive ondate migratorie popolando habitat di tundra e praterie steppose.
Animale di grande mole, era lungo più di 3 m per un peso che raggiungeva le 2 t, il Rinoceronte lanoso si distingueva per la folta pelliccia, una gobba adiposa sul groppone e per la lunghezza del primo delle due corna che superava anche il metro.
Piuttosto rara nella penisola italiana, questa specie è scomparsa dall’Europa circa 14-10 mila anni orsono a seguito del rapido riscaldamento climatico e la contrazione del suo habitat naturale.
In un’epoca precedente, circa 700.000-600.000 anni fa, l’antenato dell’elefante dalle zanne dritte (Palaeoloxodon antiquus) era già arrivato in Sicilia e a Malta, dando origine al primissimo elefante nano (Palaeoloxodon falconeri).
Più tardi, circa 200 mila anni fa, una nuova ondata migratoria dello stesso genere ha portato in Sicilia un Elefante di maggiori dimensioni che, sempre per effetto del nanismo insulare, ha dato origine a una seconda specie di elefante nano (Palaeoloxodon mnaidriensis). Questa forma più grande raggiungeva quasi i due metri di altezza.
Circa 20 mila anni orsono, quasi alla fine del Pleistocene, a causa di importanti cambiamenti climatici e modificazioni ambientali avvenuti all’inizio dell’ultima glaciazione, anche questa specie sarebbe scomparsa.
Nel corso delle fasi glaciali pleistoceniche, circa 150-250 mila di anni fa, approfittando come altre specie del considerevole abbassamento del livello del mare, popolazioni dell’Ippopotamo comune (Hippopotamus amphibius) sono arrivati in Sicilia e in altre isole mediterranee partendo dall’Africa.
A causa del lungo isolamento nell’isola, e similmente a quanto accaduto per gli Elefanti nani, anche gli Ippopotami hanno subito un processo di nanismo insulare, dando origine all’Ippopotamo nano (Hippopotamus pentlandi), specie endemica di Sicilia.
Questa specie è poi scomparsa alla fine del Pleistocene superiore, circa 20 mila anni fa, in conseguenza dei grandi cambiamenti climatici e della pressione venatoria esercitata dall’uomo preistorico.
Infine, pressappoco 100 e 15 mila anni fa, con l’avanzare di climi freddi nel corso delle fasi glaciali del Pleistocene, la Renna (Rangifer tarandus) è migrata dalle regioni artiche verso sud, spingendosi sino alle montagne e alle valli alpine e prealpine italiane.
Rifugi glaciali
Circa 20-25 mila anni fa, nel corso delle fasi più fredde dell’ultima era glaciale, l’avanzata dei ghiacci, con la conseguente contrazione delle foreste sostituite da steppe aperte e dalla tundra del nord, spinse diversi Mammiferi erbivori delle regioni artiche a cercare rifugio e cibo in aree più ospitali dell’Europa meridionale.
Alcune di queste specie sono arrivate anche nella penisola italiana, come il Bue muschiato (Ovibos moschatus) e il Cervo gigante (Megaloceros giganteus), ma al sopraggiungere del riscaldamento climatico dell’interglaciale dell’inizio dell’Olocene il loro areale si è nuovamente contratto verso nord.
Le popolazioni di altre specie che da tempo vivevano anche in Europa meridionale, come l’orso delle caverne (Ursus spelaeus), con l’avanzare del freddo dell’ultima glaciazione, si sono rifugiate nelle zone meridionali a clima più mite.
In quell’epoca, le aree del Sud Europa e tra queste anche l’Italia, hanno avuto la funzione di rifugio climatico naturale per tante specie.
Grandi predatori pleistocenici
Durante i periodi glaciali, in Europa vivevano anche singolari forme carnivore di grandi predatori che dominavano gli ecosistemi terrestri e contenevano l’impatto dei grandi erbivori (cascata trofica), controllandone il numero e gli spostamenti.
Di seguito si rappresentano le specie predatrici più rappresentative.
Il Felino dai denti a scimitarra (Homotherium), dai caratteristici incisivi grandi e sporgenti, misurava circa 1 m di altezza al garrese e un peso che poteva superare anche i 200 kg. Le zampe anteriori più lunghe di quelle posteriori, con artigli semi-retrattili, ne facevano un temibile cacciatore anche di grandi prede come Cervi giganti e giovani Mammut.
Diffuso con diverse specie in un vastissimo areale ove prediligeva praterie, steppe e aree aperte, in Eurasia il genere era rappresentato dall’Homotherium latidens, specie che è vissuta anche nella penisola italiana. Il genere è scomparso alla fine della glaciazione, circa 12 mila anni orsono.
Gli ambienti di foreste e aree boschive aperte erano popolati da una forma di Tigre dai denti a sciabola (Megantereon cultridens), che occupava un vasto areale che si estendeva in Europa, Asia, Africa e Nord America.
Di aspetto simile all’attuale giaguaro, questo animale aveva corpo robusto che misurava circa 70 cm al garrese per un peso variabile che poteva arrivare anche a 150 kg. La specie si distingueva per i canini superiori allungati e appiattiti e le zampe anteriori particolarmente robuste.
Questa Tigre dai denti a sciabola è vissuta anche in Italia, come testimoniato dai resti fossili rinvenuti principalmente nel centro della penisola. Circa 1 milioni di anni fa, i profondi mutamenti climatici del Pleistocene inferiore hanno provocato la scomparsa di questa specie dall’Italia e dall’Europa.
La Iena gigante (Pachycrocuta brevirostris) era il colosso del genere, con un’altezza al garrese di circa 1 m per un peso anche superiore ai 100 kg. Originaria dell’Africa, la Iena gigante è migrata dall’Asia nord-orientale all’Europa, spingendosi sino all’Italia centrale. Si è estinta circa 500 mila anni fa soprattutto a causa delle sopraggiunte avversità climatiche e ambientali.
Durante le fasi glaciali del tardo Pleistocene, allorquando il livello del mare più basso facilitava il passaggio, dall’Europa continentale esemplari di Iena macchiata (Crocuta crocuta) sono migrati in Sicilia ove si sarebbe vissuta sino a circa 16.000 anni fa. Non è certo che nell’isola questa specie abbia sviluppato caratteristiche di gigantismo insulare.
In quei tempi, coevo e in parziale competizione con la Iena gigante, c’era anche il Lupo grigio (Canis lupus), discendente da antenati euroasiatici e diffuso progressivamente in buona parte dell’emisfero boreale.
Nella penisola italiana, dal lungo isolamento di popolazioni di Lupo grigio si è originato il Lupo appenninico o italiano (Canis lupus italicus), sottospecie endemica dei rilievi della catena appenninica.
Anche in Sicilia il Lupo grigio ha dato origine al Lupo siciliano (Canis lupus cristaldii), esclusivo dell’isola. Tra gli anni venti e quaranta del secolo scorso, il Lupo siciliano si è estinto a causa della caccia a cui è stato sottoposto,
In quel periodo, anche antenati del Leone migrarono in Eurasia ove si sono evoluti nel Leone delle caverne (Panthera spelaea) che oltre 600 mila anni orsono ha popolato varie parti d’Italia sino alla Sicilia.
Estremamente diffusa dal Pleistocene medio all’inizio dell’Olocene, questa specie, conosciuta anche con il nome di Leone della steppa, è celebre per essere stata rappresentata in tante pitture rupestri del Paleolitico, come quelle di delle grotte di Chauvet e di Lascaux in Francia e quelle della Grotta Romanelli in Puglia (Italia).
Con la fine del periodo glaciale il Leone delle caverne si è estinto in Europa e in Italia.
Altri predatori di quell’epoca originari delle regioni artiche e boreali che seguendo l’espansione delle tundre e delle steppe fredde si sono spostati verso il sud dell’Europa. In quell’epoca, diverse specie tipiche dei freddi ambienti nordici si sono spinte in Italia ove trovavano vaste aree a tundra e steppa. Sono vissuti anche in Italia la Volpe artica (Vulpes lagopus) e il Ghiottone (Gulo gulo).
La Volpe artica con l’innalzamento della temperatura della fine dell’ultimo glaciale ha lasciato le terre meridionali per ripopolare gli ambienti nordici d’origine.
Diversa sorte è toccata al Ghiottone che, ritenuto immeritatamente un predatore spietato e dannoso, è stato oggetto di caccia senza tregua che nel secolo XIX ha portato alla sua scomparsa dalla penisola italiana.
Nanismo e gigantismo insulare
La riduzione della mole corporea, nanismo, è un fenomeno che si riscontra molto frequentemente nei popolamenti animali delle isole, soprattutto in quelle di piccola estensione.
Causato principalmente dalla limitata disponibilità di cibo e dall’isolamento genetico, oltre che per l’assenza di grandi predatori, il fenomeno del nanismo è particolarmente rilevabile in specie i cui individui sono di norma di grandi dimensioni, come nei mammiferi.
In Sicilia, a seguito del lungo isolamento e delle particolari condizioni ambientali, l’Elefante dalle zanne dritte si è frazionato in due specie endemiche di Elefanti nani preistorici, classici esempi del processo detto di nanismo insulare.
Il Palaeoloxodon falconeri, piccolo elefante che non arrivava al metro di altezza, scomparso 200 mila di anni fa.
Il Palaeoloxodon mnaidriensis, diffuso in Sicilia e Malta, raggiungeva i 2 m al garrese e si è estinto parecchio tempo dopo, 19-20 mila anni fa, anche a seguito dell’arrivo dell’uomo.
Altra specie di Elefante nano, derivata sempre dal gigantesco Elefante dalle zanne dritte, è il Palaeoloxodon tiliensis, alto meno di 1,5 ed endemico dell’isola greca di Tilos.
Anche l’Ippopotamo nano di Sicilia (Hippopotamus pentlandi) e l’Ippopotamo nano di Malta (Hippopotamus melitensis) sono chiare manifestazioni di nanismo insulare.
Altri esempi di forme nane sono quelli derivati da antenati di grandi Cervidi euroasiatici che nel Pleistocene pervennero in isole del Mediterraneo.
Come il Premegaceros cacioti, endemismo condiviso dalla Sardegna e dalla Corsica, e il Cervus elaphus siciliae, sottospecie endemica di Sicilia. Queste due forme nane si sarebbero successivamente estinte in seguito ai profondi cambiamenti climatici e ambientali della fine dell’ultima glaciazione
Viceversa, il gigantismo insulare è un processo evolutivo per cui alcune specie di piccole dimensioni rimaste a lungo isolate in piccole isole presentano dimensioni notevolmente maggiori rispetto a quelle che vivono sul continente. Questo fenomeno è imputabile all’assenza di grandi predatori e a una ridotta pressione selettiva.
Esempi di gigantismo insulare di seguito indicati.
Il Ghiro gigante (Leithia melitensis), roditore endemico di Sicilia e di Malta le cui dimensioni misuravano circa il doppio di quello dell’attuale Ghiro (Glis glis), scomparso alla fine del Pleistocene, circa 10-12 mila anni fa.
Iena gigante siciliana (Crocuta crocuta spelaea), sottospecie più massiccia e di maggiori dimensioni rispetto alla Iena macchiata africana, da cui si è originata. Uno dei maggiori predatori dell’epoca, si è estinta verso la fine dell’ultimo glaciale.
Out of Africa
Praticamente coevo dei fatti sopra accennati è l’arrivo in Europa dei primi Ominidi del genere Homo. Secondo la principale teoria paleoantropologica, Out of Africa, essi si sono originati in Africa e poi propagati nel continente europeo con diverse ondate migratorie, passando per il Medio Oriente e il Caucaso.
Va notato che in quell’epoca, il Medio Oriente e il Caucaso hanno rappresentato una tappa obbligata per tutti i flussi migratori diretti dall’Africa in Eurasia..
Lungo questa rotta, poco meno di 2 milioni di anni fa arrivarono forme arcaiche, come Homo ergaster e in tempi successivi anche Homo erectus.
Parecchio tempo dopo, all’incirca 600-800 mila anni, una ulteriore ondata migratoria, sempre proveniente dall’Africa, ha portato in Europa Homo heidelbergensis.
Questa specie ha rimpiazzato le forme precedenti e, in un periodo compreso tra circa 400 e 500 mila anni fa, ha dato origine in Eurasia all’antenato di Homo neanderthaliensis.
Relitti glaciali
In questi tempi, mentre l’Uomo di Neandertal continuava in Eurasia l’avventura evolutiva iniziata dai suoi antenati in Africa, la Terra entrava in una fase di forte estremizzazione climatica, passando dal grande freddo di una glaciazione estrema a uno dei periodi più caldi della sua storia recente.
Dopo la forte espansione dei ghiacci avvenuta durante la fase glaciale, la Terra entrò nell’interglaciale (Riss-Würm) e ritornò a riscaldarsi.
Con le elevate temperature, i ghiacciai continentali si sono sciolti e l’acqua è tornata negli oceani.
Ciò ha provocato l’innalzamento del livello del mare di ben 5-7 m e forse anche oltre che ha sommerso i ponti di terra emersi durante la precedente glaciazione.
Inoltre, il clima sensibilmente più caldo e umido ha determinato una profonda trasformazione del paesaggio europeo e mediterraneo. Le aree di tundre e steppe fredde si sono ristrette consentendo l’espansione imponente su gran parte dell’Europa delle foreste miste di latifoglie. Anche le conifere, quali pini ed abeti, dominanti nei periodi freddi sono stati confinati nei rilievi montuosi più elevati.
Le sopraggiunte condizioni ambientali consentirono la diffusione verso latitudini più settentrionali di specie animali tipiche di clima caldo o temperato
Dal loro canto, gli animali di ambienti freddi che durante la precedente fase glaciale erano scesi a cercare rifugio in regioni temperate più meridionali, con il ritorno del caldo migrarono nuovamente verso le regioni artiche del Nord Europa oppure si sono spostati sulle fasce montane più elevate.
Qui sarebbero rimasti intrappolati e isolati assumendo il significato ecologico e biogeografico di relitti glaciali.
Oggi, tante di quelle specie rimaste allora intrappolate si sono estinte, diverse altre sopravvivono ma sono fortemente in pericolo a causa del riscaldamento del Pianeta che restringe ulteriormente i loro habitat altomontani.
Tra i Mammiferi, classici esempi di relitti glaciali attualmente relegati sull’arco alpino sono la Lepre variabile o Lepre bianca (Lepus timidus), la Marmotta alpina (Marmota marmota) e l’Ermellino (Mustela erminea).
Si afferma Homo sapiens
Passa il tempo e circa 45 mila anni fa, attraverso il Medio Oriente arrivò una grande ondata migratoria che assieme ad altre specie porta in Eurasia un nuovo ospite d’eccezione.
È Homo sapiens, specie originaria del continente africano ove aveva subito un lungo percorso evolutivo durato circa 200-300 mila anni nel corso del quale aveva acquisito un notevole e prezioso bagaglio di capacità intellettive e applicative.
Propagatosi rapidamente, sul territorio euroasiatico. Homo sapiens venne in contatto con un suo parente molto prossimo.
Si trattava di Homo neanderthalensis, specie a distribuzione euroasiatica originata da lontani antenati migrati molto tempo prima, circa 600-800 mila anni fa.
Allorché si sono incontrate, a parte alcune sottili sfumature, tra le due specie non c’erano particolari differenze morfologiche e nemmeno nelle capacità cognitive e operative tali da determinare una superiorità netta dell’uno sull’altro.
Entrambi avevano cervelli grandi e sapevano già lavorare la pietra e l’osso per ottenerne oggetti vari, quali lame e arpioni per la caccia e la pesca; erano anche in grado di costruire arnesi per tagliare il legno e persino aghi per cucire.
Ambedue le specie sapevano sfruttare in modo il fuoco, costruire rifugi in cui ripararsi e utilizzare le pelli per confezionarsi indumenti rudimentali per proteggersi dal freddo delle steppe glaciali.
Ed ancora i componenti di ciascuna specie, vivevano in gruppi sociali organizzati, più o meno numerosi, e in grado di comunicare tramite un linguaggio basato sull’uso di parole.
Sapevano creare monili, usare pigmenti come l’ocra e dipingere pitture rupestri, dimostrando capacità di usare segni, parole o immagini per rappresentare idee astratte e oggetti.
Ed ancora, cacciavano in gruppo animali di grande mole e si prendevano cura dei membri del gruppo deboli o feriti.
In Europa, Homo sapiens e Homo neanderthaliensis sono coesistiti per parecchio tempo, circa 5-8 mila anni, si sono anche incrociati tra loro e probabilmente hanno anche avuto discendenti.
Poi, circa 40 mila anni fa, Homo neanderthalensis è scomparso progressivamente soprattutto a seguito dei cambiamenti climatici e dell’isolamento, demografico e genetico, causato dalla sua organizzazione sociale.
Da quel momento in poi e sino ad oggi, Homo sapiens è rimasto l’unica specie del genere sulla Terra.
Però, era una specie le cui già straordinarie capacità, uniche tra i viventi, di incrementare e trasmettere da una generazione all’altra il bagaglio di conquiste cognitive e tecniche via via conseguite (evoluzione culturale), erano ulteriormente rafforzate dall’eredità genetica a livello immunologico conseguita tramite gli incroci con Homo neanderthalensis.
L’evoluzione culturale assieme a quella biologica hanno consentito all’Homo sapiens di diffondersi in tutto il pianeta e di sopravvivere anche in ambienti e in terre ostili, costituendo la chiave di volta della nascita dell’uomo moderno.
Con l’invenzione della scrittura, avvenuta circa 5 mila anni fa in Mesopotamia e quindi in Egitto, finisce la preistoria. Ma questa è un’altra storia.
MAMMIFERI CLASSIFICAZIONE
Alla classe dei Mammalia viene attribuito un numero imprecisato di specie, compreso tra 5.500 e 6.500. Presenti in quasi tutti gli ambienti del pianeta, dai più caldi ai più freddi, i Mammiferi hanno colonizzato anche le profondità degli oceani e le cime più elevate. Questo dato è puramente indicativo: varia a seconda delle fonti scientifiche e cresce di continuo grazie a nuove scoperte o riclassificazioni.
Oggi, parlare di classificazione dei mammiferi non è semplice.
Esistono divergenze di vedute tra gli studiosi e gli strumenti di analisi tassonomica sono molto cambiati. Alla tradizionale classificazione basata sulla morfologia comparata si affiancano oggi la genetica, la biologia molecolare — fondamentali per chiarire la filogenesi e le relazioni di parentela — e la paleontologia, utile a ricostruire i percorsi evolutivi.
Si precisa che in questa sede si farà riferimento ad una classificazione semplificata basata sulle categorie tassonomiche tradizionali.
Pertanto, non saranno prese in considerazione categorie intermedie di vario grado, quali Supercoorte, Coorte Magnordine, Grandordine, Mirordine e così via.
Chiarito il nostro punto di vista sulla loro origine e tassonomia, concorderemo con l’opinione che fraziona la classe dei Mammalia, in 2 sottoclassi: Prototheria o Ovipari, e Theria o Placentati, a loro volta suddivise in infraclassi.
Prototheria
costituiscono una sottoclasse che comprende forme ovipare, che hanno conservato un’organizzazione più primitiva, più simile a quella dei Rettili, ma allo stesso tempo altamente specializzata.
In particolare i Prototheria si caratterizzano per il fatto che le femmine depongono uova che vengono incubate in un nido, come fa l’ornitorinco, oppure le trattengono in una tipica borsa cutanea, come avviene nelle echidna.
Per questa caratteristica, alcuni erroneamente considerano i Prototheria l’anello di congiunzione tra mammiferi e rettili.
Inoltre, i Prototheria sono dotati di ghiandole mammarie che però, a differenza di tutti gli altri mammiferi, non sono organizzate in vere e proprie mammelle e mancano di capezzolo.
I cuccioli che sgusciano dalle uova fecondate, ciechi, privi di pelo e immaturi, si aggrappano alla madre e ne leccano il latte che trasuda attraverso diversi piccoli orifizi cutanei.
D’altra parte, c’è da dire che con i due emisferi cerebrali non sono collegati dal corpo calloso.
Per questa caratteristica, i Prototheria si differenziano alquanto dai rettili e si avvicinano maggiormente ai marsupiali.
Inoltre, tutti i rappresentanti dei Prototheria sono provvisti della cloaca, cioè di un’unica apertura in cui sboccano il canale intestinale e le vie urinarie e genitali.
A questo proposito, si ricorda che la cloaca è un organo cavitario presente in molti altri animali vertebrati, quali pesci, anfibi, rettili e uccelli, tuttavia le esclusive peculiarità strutturali della cloaca dei Prototheria non assumono il significato di una loro parentela di valore filogenetico con qualcuno di questi raggruppamenti.
Gli adulti delle forme afferenti alla sottoclasse hanno il muso a forma di becco e la loro bocca è priva di denti.
Tuttavia, va notato che i piccoli dei rappresentanti di questa sottoclasse, al pari delle forme fossili sono provvisti di molari a tre cuspidi.
Ed ancora, i maschi dei Prototheria sono tipicamente armati sulla faccia interna delle zampe posteriori di uno speciale sperone corneo a forma di uncino e canalizzato, connesso ad una ghiandola femorale o crurale che secerne un potente veleno.
Tale arma viene utilizzata maggiormente durante il periodo riproduttivo, nei combattimenti tra maschi per il possesso del territorio o la conquista delle femmine.
Ai Prototheria, diffusi in Oceania, vengono attribuite appena 5 specie, forse 6, tutte riunite nell’unico ordine dei Monotremata, il cui nome scientifico (un “solo foro”) fa riferimento alla presenza della cloaca.
A seguire si rappresentano gli elementi distintivi essenziali delle specie.
L’Ornitorinco (Ornithorhynchus anatinus Shaw, 1799), unica specie del genere, ha un aspetto molto singolare, come evocato dal nome comune (muso di uccello) e da quello scientifico, che significa “muso di anatra”.
L’Ornitorinco è endemico dell’Australia orientale e dell’isola di Tasmania, dove vive in piccoli corsi d’acqua e fiumi. Ottimo nuotatore, si nutre di larve di insetti, vermi, gamberi e occasionalmente anche di piccoli animali d’acqua, che localizza rilevandone l’elettricità corporea (elettrolocazione).
Le restanti specie di questo raggruppamento, note come Echidne o Formichieri spinosi, vengono ascritte a due generi e sono diffuse in Australia, e isole di Tasmania e di Nuova Guinea.
L’Echidna dal becco corto (Tachyglossus aculeatus Shaw, 1792) ha aculei lunghi fino a 6 cm, un corpo lungo da 30 a 45 cm, una coda rudimentale di circa 1 cm. Le zampe sono robuste e provviste di artigli.
La bocca, stretta e priva di denti, ha la lingua lunga e protrattile, ricoperta di saliva vischiosa su cui restano attaccati formiche e termiti e altri piccoli invertebrati che costituiscono l’alimento principale.
L’Echidna dal becco corto vive in Australia, e nelle isole di Tasmania e di Nuova Guinea ove si rinviene in vari ambienti, ma evita i deserti caldi estremi e le zone di alta montagna innevate.
L’Echidna dal becco lungo di Sir David (Zaglossus attenboroughi Flannery & Groves, 1998) è la specie più piccola del genere.
Ha una folta pelliccia, generalmente di colore marrone, e le zampe sono armate di cinque artigli, adatte a scavare.
Questa specie è propria delle Montagne dei Ciclopi situate nella parte occidentale dell’isola di Nuova Guinea.
L’Echidna dal becco lungo occidentale (Zaglossus bruijni Peters & Doria, 1876) misura circa 80-90 cm per circa 10-15 kg di peso, e si caratterizza per avere il muso lungo e appuntito, rivolto verso il basso.
Il dorso è ricoperto da aculei grossolani e le zampe portano tre artigli o grosse unghii utilizzate per scavare.
La bocca è sprovvista di denti e possiede una grossa lingua vischiosa con cui cattura vermi terrestri che rappresentano il suo alimento principale. La specie vive in Nuova Guinea.
L’Echidna dal becco lungo orientale (Zaglossus bartoni Thomas, 1907) è il più grande dei Monotremi. Si distingue per le zampe anteriori e posteriori che presentano spesso cinque artigli (o unghie) robusti, usati per scavare alla ricerca di lombrichi e larve. Il corpo, dotato di aculei, è ricoperto di una folta pelliccia nera e manca di coda.
La specie è endemica dell’isola di Nuova Guinea.
Theria
detti anche Placentati, sono animali vivipari dotati di placenta, struttura temporanea che si forma nell’utero materno durante la gravidanza e congiunge la madre al feto mediante il cordone ombelicale.
La placenta è l’organo fondamentale per lo svolgimento dei processi vitali dell’embrione, quali alimentazione, ossigenazione, eliminazione delle sostanze di rifiuto e produzione degli ormoni necessari per portare a compimento la gestazione.
La sottoclasse dei Theria viene frazionata nella infraclasse dei Metatheria (Marsupiali) e in quella degli Eutheria (Euplacentati) nella quale vengono comprese gli attuali Mammiferi vivipari.

Triceratops © MathKnight

Heterodontosaurus tucki © Dewald du Plessis

Ornithorhynchus anatinus © Giuseppe Mazza

Ornithorhynchus anatinus © Giuseppe Mazza

Tachyglossus aculeatus © Giuseppe Mazza

Tachyglossus aculeatus ssp. aculeatus © guanocrazy

Zaglossus bartoni © anonymous

Zaglossus bruijni © Giuseppe Mazza

Macropus rufus © Giuseppe Mazza

Kayentatherium – Immagine generata con intelligenza artificiale da Giuseppe Messina

Castorocauda – Immagine generata con intelligenza artificiale da Giuseppe Messina

Thylacoleo carnifex leone marsupiale australiano. Si ritiene che si sia estinto intorno a 35.000-45.000 anni fa – Immagine generata con intelligenza artificiale da Giuseppe Messina

Diprotodon – imparentato con i Vombati, con 3 m di lunghezza, fu il più grande mammifero marsupiale mai esistito – Immagine generata con intelligenza artificiale da Giuseppe Messina

Sinodelphys szalayi – Progenitore dei Marsupiali – Immagine generata con intelligenza artificiale da Giuseppe Messina